En este artículo colocamos en contexto la edad y el envejecimiento, incluimos la menopausia como desarrollo en la edad media de la mujer y examinamos detenidamente la fisiología del eje gonadal a la luz de los últimos descubrimientos del inicio de la menstruación, su desarrollo hasta la etapa de la transición menopáusica y la explicación actual del origen de los síntomas vasomotores. También se revisa los tratamientos derivados de los nuevos conocimientos acerca de la regulación de gonadotropinas que podrían ser útiles como alternativa en las mujeres que no toleran o que tienen contraindicación absoluta de la terapia hormonal convencional con estrógeno y progestágenos.
Palabras clave:menopausiaSVMciclo gonadalneuronas KNDy
In this article we put age and aging into context, include menopause as a development in the middle age of women, and carefully examine the physiology of the gonadal axis in light of the latest discoveries of the onset of menstruation, its development to the stage of the menopausal transition and the current explanation of the origin of vasomotor symptoms. The treatments derived from the new knowledge about the regulation of gonadotropins that could be useful as an alternative in women who do not tolerate or have absolute contraindication to conventional hormonal therapy with estrogen and progestogens are also reviewed.
Key words:menopauseVMSgonadal cycleKNDy neurons
Introducción
Estamos asistiendo a un fenómeno relativamente nuevo: se puede esperar llegar a viejo. Estamos a punto de convertirnos en una sociedad rectangular. Es decir, una sociedad en la que prácticamente todos sus individuos sobreviven hasta una edad avanzada y fallecen después de una manera bastante repentina en un intervalo estrecho de edades centrado alrededor de los 85 años.1
En el año 1000 a. C., la esperanza de vida era de tan sólo 18 años. En torno al año 100 a. C., la época de Julio César había alcanzado los 25 años. En 1900, la esperanza de vida aún seguía siendo únicamente de 49 años en Estados Unidos. En 2005, la esperanza de vida media fue de 80,7 años en las mujeres y 75,4 en los hombres. Hoy en día, una vez alcanzados los 65 años, los hombres pueden esperar llegar hasta los 82,2 años y las mujeres hasta los 85 años. Se puede prever que, finalmente, unos dos tercios de la población vivirán 85 años o más, y que por encima del 90 % vivirá más de 65 años.1 Una buena definición general de ancianidad es una edad de 65 años o más, aunque no es hasta los 75 años cuando una proporción importante de personas ancianas muestra el deterioro y los problemas característicos.1 Dos fenómenos modernos han influido en el ritmo de cambio. El primero fue la explosión demográfica que tuvo lugar tras la Segunda Guerra Mundial (1946-1964), y que aplazó temporalmente el envejecimiento de la población, pero que ahora está provocando un envejecimiento más rápido de la población general. La segunda influencia más importante ha sido la disminución moderna de la mortalidad en la ancianidad. El éxito a la hora de postergar la muerte ha aumentado el segmento superior del perfil demográfico.1 Nuestra sociedad ha eliminado prácticamente la muerte prematura. Las enfermedades del corazón y la circulación y los tumores malignos constituyen en la actualidad las principales causas de muerte. El motivo no radica en un incremento o una epidemia; es resultado del éxito a la hora de eliminar prácticamente las enfermedades infecciosas. Ahora, el determinante fundamental son las enfermedades crónicas, influidas por la genética, el modo de vida, el entorno y el propio envejecimiento. El principal avance que aún debe lograrse tiene que ver con las enfermedades cardiovasculares. No obstante, aun cuando se eliminaran totalmente el cáncer, la diabetes y todas las enfermedades circulatorias, la esperanza de vida no superaría los 90 años.1 Si tenemos en cuenta todo lo mencionado anteriormente, es evidente suponer que cada día más la población femenina alcanzará una edad igual o superior a los 50 años, momento para el cual los cambios fisiológicos propios de su organismo van a llevar al final de su vida reproductiva con todo lo que esto implica.1
Climaterio y menopausia
La menopausia es el período en que tiene lugar el cese permanente de la menstruación tras la desaparición de la actividad ovárica. El término menopausia deriva de los términos griegos men (mes) y pausis (cese). Los años que preceden a la menopausia y abarcan el cambio desde unos ciclos ovuladores normales al cese de la menstruación se conocen como años de la transición menopáusica, que se caracteriza por irregularidad de los ciclos menstruales. Climaterio deriva de la palabra griega que significa escalera. Climaterio, un término más antiguo, más general y menos preciso, es un síndrome e indica el período en que una mujer avanza de la etapa reproductora de la vida a los años posmenopáusicos, pasando por la transición menopáusica y la menopausia.1 Como lo mencionamos anteriormente, la menopausia es el final de la vida reproductiva en la mujer dado por el cese de la función ovárica; y como sabemos, los ovarios son la principal fuente de hormonas en el organismo femenino: por lo tanto, es claro suponer que al finalizar la producción de estas hormonas se producirán cambios que van a generar diferentes tipos de síntomas que se van a presentar en diferentes grados de severidad.
A menudo, resulta difícil entender exactamente el complejo sintomático que puede mostrar una paciente. Algunas pacientes presentan diversas reacciones intensas que pueden ser incapacitantes. Otras no muestran reacciones o presentan reacciones mínimas que pasan desapercibidas hasta que se efectúa una evaluación médica detallada. Durante el climaterio puede haber estados relacionados con las fluctuaciones hormonales que podríamos describir como: 1. Los relacionados con el exceso relativo de estrógenos:
Transición Menopaúsica que incluye hemorragia uterina disfuncional, hiperplasia endometrial y cáncer de endometrio. 2. Los relacionados con la privación de estrógenos a. Síntomas Vasomotores (SVM) o fogajes b. Osteoporosis c. Disfunción endotelial d. Enfermedad Cognitiva 3. Los relacionados con la hormonoterapia. En esta revisión nos centraremos específicamente en los síntomas vasomotores generados en esta etapa de la vida.
Síntomas vasomotores (SVM)
Los síntomas vasomotores se consideran el sello distintivo del climaterio femenino, y la mayor parte de las mujeres posmenopáusicas los sufre en cierto grado. El término fogaje sirve para describir el inicio repentino de un enrojecimiento de la piel en cabeza, cuello y tórax, acompañado de un aumento de la frecuencia cardíaca y una sensación de intenso calor corporal. El fogaje termina a veces con transpiración profusa. La duración varía entre unos segundos y varios minutos y, rara vez, una hora. La frecuencia puede oscilar entre rara y recidivante cada pocos minutos. Los fogajes son más frecuentes e intensos por la noche (cuando una mujer se despierta a menudo) o durante los momentos de estrés. En un ambiente frío, los sofocos son menos numerosos, menos intensos y más breves en comparación con uno cálido. Lo más importante es que puede influir en la calidad de vida de la mujer e interferir en el trabajo o las actividades de ocio.1 La característica distintiva de la declinación del estatus estrogénico en el cerebro es el fogaje, el cual se conoce más genéricamente como un episodio vasomotor. Por lo general se refiere a una sensación aguda de calor, mientras que el rubor o episodio vasomotor incluye cambios en la percepción temprana de este evento y unos cambios en la piel (incluyendo la diaforesis). Los fogajes generalmente ocurren durante 2 años después de iniciarse la deficiencia estrogénica, pero pueden persistir durante 10 o más años.1 Un estudio longitudinal reciente mostró que la duración promedio de los síntomas vasomotores significativos es de 7,4 años. En 10 a 15% de las mujeres, estos síntomas son severos e incapacitantes. En EE. UU., la incidencia de estos episodios varía según los diferentes grupos étnicos. Los síntomas son mayores en las mujeres hispanas y afroamericanas, intermedios en las mujeres blancas y menores entre las mujeres asiáticas2. La caída en los niveles estrogénicos precipita los síntomas vasomotores. Aunque la causa próxima del rubor no se ha dilucidado, los episodios se deben a una respuesta hipotalámica (probablemente mediada por catecolaminas) al cambio en el estatus estrogénico.3 Los mecanismos de control hipotalámicos de la secreción de GnRH se hacen al parecer a través de noradrenalina. Una mayor actividad noradrenérgica, con disminución de dopamina, ha sido descrita por un aumento relativo de catecolestrógenos.3 La disfunción neurorregulatoria que ocurre en la menopausia se manifiesta con fogajes y sudoración.
Durante el episodio de fogajes hay disminución de la temperatura timpánica y aumento de la frecuencia cardiaca y flujo sanguíneo periférico. Los centros hipotalámicos que regulan la temperatura corporal están localizados en el hipotálamo anterior y el núcleo preóptico. También en la región preóptica se encuentra uno de los dos focos de neuronas GnRH positivas.3 La proximidad de los centros termorreguladores hipotalámicos y las neuronas GnRH positivas está regulada posiblemente por los mismos neurotransmisores y sería la causa de la baja de estrógenos y la aparición de fogajes. La dopamina, la norepinefrina y los opioides están involucrados en la regulación de la temperatura corporal. Esta región es endorfinosensible y se ha visto como la infusión de naloxona (antagonista opioide) inhibe los fogajes y disminuye la pulsatilidad de la LH.3 Sin embargo, no hay una relación constante entre secreción de gonadotropina y generación de fogajes, lo que confirma la respuesta común de LH y síntomas vasomotores a un mecanismo de trastornos de neurotransmisores, posiblemente opiáceos. Esta situación se revierte con la administración de estrógenos, y especialmente con progesterona.3 La deficiencia de estrógenos y sus metabolitos sería la causa de la alteración de la regulación de la temperatura y de los niveles de LH al incrementar el metabolismo de las catecolaminas cerebrales, ejerciendo una acción antidopaminérgica central o inhibiendo la interacción de los opiáceos con su receptor. Además del incremento de LH, durante el episodio de los fogajes hay una notable disminución de noradrenalina.3 Además, la actividad simpática aumenta con la edad; la deaminación intraneuronal de noradrenalina no cambia y hay baja síntesis intraneuronal de noradrenalina.3
- La baja de estrógenos es seguida por una disminución de betaendorfinas.
Esto conlleva una disminución de la actividad noradrenérgica. • Un incremento del sistema Alfa adrenérgico central. • Estimulación de neuronas GnRH dependientes. • Alteración del centro termorregulador, elevación de la secreción pulsátil de LH.3
Neuroendocrinología del ciclo menstrual
La evidencia reciente apunta hacia cambios neuromoduladores cerebrales. Las neuronas de KNDy en el hipotálamo activan a receptores de la kisspeptina y a otros en las neuronas de GnRH, y esta activación libera GnRH. Al mismo tiempo, las neuronas de KNDy también inciden en el centro termorregulador en el hipotálamo.4 A continuación se explicará la fisiología de la neuroendocrinología del control hormonal del ciclo ovárico en cuanto a la producción de GnRH y su asociación con los síntomas vasomotores de la menopausia por medio de las neuronas KNDy.
Péptido inhibidor de la síntesis de gonadotrofinas (GnIH)
El péptido inhibidor de la secreción de gonadotrofinas, de la familia de los péptidos RFamida, fue caracterizado en el cerebro de las aves en 2001, localizándose la expresión del gen que codifica su síntesis exclusivamente en el diencéfalo.5 El GnIH ejerce su acción a nivel de las células diana a través de un receptor específico unido a proteína G, GPR147, que se expresa en la adenohipófisis y en el hipotálamo. En consecuencia, el GnIH parece inhibir la secreción de gonadotrofinas actuando directamente sobre la hipófisis y también inhibiendo la liberación de GnRH.6
Sistema kisspeptina/GPR54
Durante los últimos años se ha generado un importante avance en los conocimientos de la regulación de la función reproductora, entre los que destaca el sistema kisspeptina/GPR54.7 Las kisspeptinas, neuropéptidos del grupo RFamida, son una familia de péptidos codificados por el gen Kiss1 localizado en el brazo largo del cromosoma 1 (1q32), que actúan uniéndose al receptor acoplado a la proteína G, denominado GPR54 o Kiss1R.7 La estimulación de GPR54 por la kisspeptina constituye el más potente estímulo fisiológico para la secreción de GnRH y es indispensable para alcanzar los elevados niveles necesarios de este para procesos como pubertad y ovulación; sin embargo, la falta del estímulo de la kisspeptina no anula totalmente la secreción de GnRH y permite un cierto nivel de gonadotrofinas.8 Las kisspeptinas se sintetizan como pre-prokisspeptina, un péptido precursor de 145 aminoácidos que, por proteólisis y amidación, da lugar a la proteína biológicamente activa, de 54 aminoácidos.7 El papel de las kisspeptinas y su receptor en la fisiología reproductiva no fue conocido hasta 2003, año en que fueron descritos casos de hipogonadismo hipogonadotropo idiopático como consecuencia de mutaciones del gen del receptor GPR54.9 GPR54 es un receptor formado por 7 dominios transmembrana, asociado a proteínas G, cuya activación produce un aumento del Ca++ intracelular sin cambios en el nivel de AMPc, a través de señales intracelulares en que participan Gαq/11- y β-arrestina que median la secreción de GnRH.10 El aumento de Ca++ intracelular se debe a la activación de la fosfolipasa C y a la generación de inositol trifosfato y diacilglicerol y PKC. Los receptores Kiss1R presentan la capacidad de internalizarse y desensibilizarse tras continua exposición a su ligando, siendo después reciclados hacia la membrana celular. También presentan la propiedad de heterodimerizarse con el receptor de GnRH.7 Los individuos portadores de mutaciones o deleciones inactivadoras de GPR54 presentan infantilismo genital, fallo de la función gonadal e hipogonadotropismo y conservan la capacidad de responder a GnRH exógeno, lo que excluye alteraciones a nivel hipofisario.
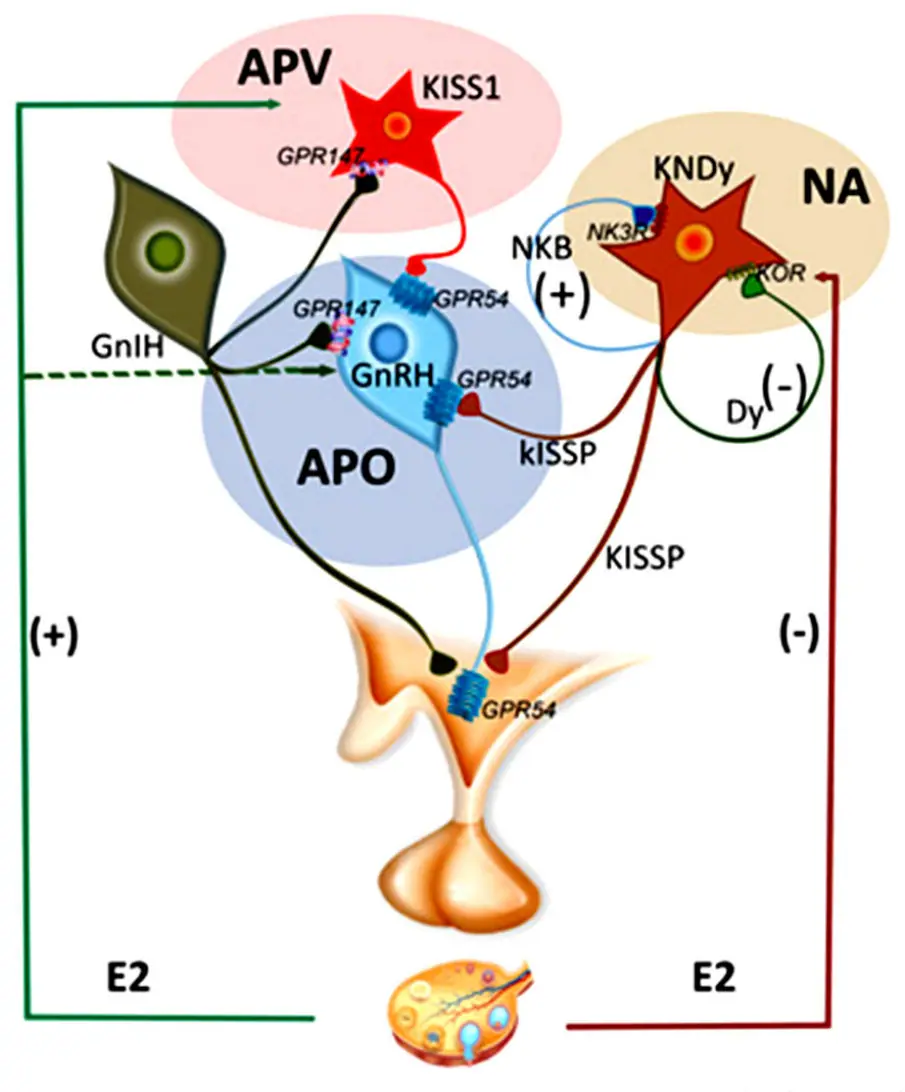
En distintas especies de mamíferos, las neuronas productoras de kisspeptina (NK) se localizan fundamentalmente en el área preóptica y en el núcleo arcuato, poblaciones celulares que también han sido identificadas en la especie humana, aunque existen ciertas diferencias en la localización de estas neuronas entre las distintas especies.12En efecto, en el hombre, las neuronas que expresan kisspeptina en el núcleo infundibular (equivalente al arcuato de otras especies) coexpresan NKB pero escasa dinorfina; por el contrario, existe evidencia de que las mismas neuronas del núcleo infundibular de las mujeres expresan kisspeptina, dinorfina y NKB.11 La presencia de KISS1mRNA fue documentada en ganglios basales e hipotálamo en el cerebro humano en 2001, época en que también se localizó la expresión de GPR54.13 Las neuronas del área periventricular anterior del ventrículo III muestran un importante dimorfismo, siendo mucho más abundantes en las hembras, lo que se relaciona con la acción organizadora de la testosterona neonatal. Estas neuronas se han relacionado con el retrocontrol positivo del estradiol y coexpresan actividades gabaérgicas y glutamatérgicas.14Determinadas neuronas del área periventricular son el substrato del retrocontrol positivo del estradiol. En animales inferiores se produce una descarga de GnRH que va inmediatamente seguida por la descarga preovulatoria de gonadotrofinas, pero en la especie humana no parece necesario que se produzcan cambios preovulatorios en la secreción de GnRH para que la descarga preovulatoria de gonadotrofinas se produzca.7 El estudio del fenotipo de las neuronas kiss de núcleo arcuato ha evidenciado que, además de kisspeptina, expresan neurokinina B (NKB) y dinorfina (Dy), por lo que se las conoce cómo neuronas KNDy. Estos tres productos se almacenan de forma independiente, en vesículas diferenciadas, en el interior de las células KNDy.15 La mayor parte de las células que sintetizan dinorfina expresan receptores a la progesterona y están implicadas en el retrocontrol negativo de la progesterona sobre la GnRH.16 La dinorfina es un miembro de la familia de los péptidos opioides endógenos que actúa a través del receptor opioide kappa (KOR).
NKB juega un papel importante en la estimulación del desarrollo folicular en la mujer.17 Ha sido postulada una hipótesis sobre la forma en que las neuronas KNDy, sintetizando y liberando simultáneamente tres péptidos, kiss, NKB y Dy, pueden regular la síntesis y liberación de GnRH. NKB y Dy pueden actuar autosinápticamente sobre las células KNDy que, a su vez, actuarían sobre las neuronas GnRH utilizando kisspeptina como efector. Las neuronas kiss1 del núcleo arcuato constituyen un eslabón importante para la integración de las señales que transmiten los esteroides sexuales causantes del retrocontrol negativo que se ejerce sobre las neuronas GnRH y, por lo tanto, a las células gonadotropas. Estos efectos inhibidores de las neuronas kiss se ejercen a través de los receptores alfa de estradiol (ERα). Al margen de las neuronas kiss, la participación de la hipófisis en el retrocontrol negativo ha sido documentada7 figura 1.
Mecanismo de generación de fogajes
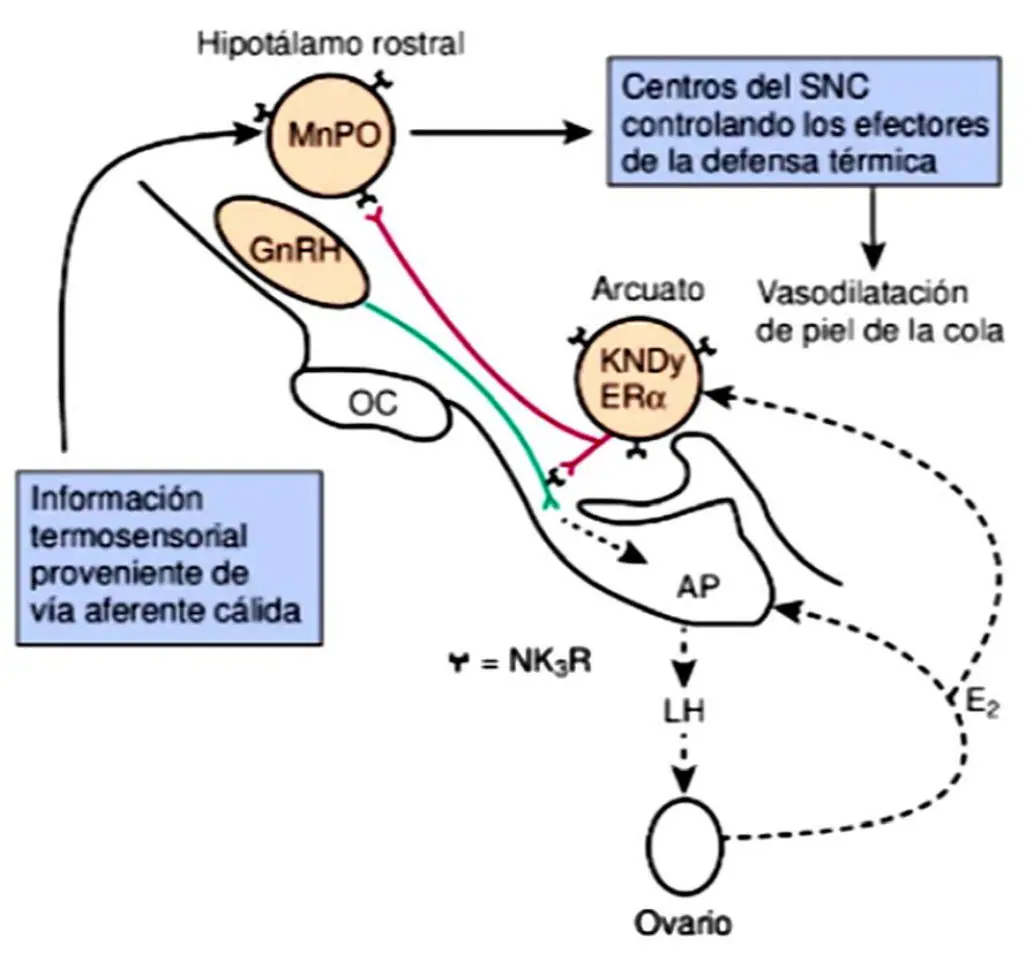
Revisada la fisiología normal del organismo femenino en cuanto al papel que juegan las neuronas KNDy en la secreción de GnRH y la estimulación de gonadotrofinas, ¿cómo están implicadas estas mismas neuronas en el mecanismo de generación de los fogajes? La evidencia actual sugiere que la secreción pulsátil de GnRH está modulada por una subpoblación de neuronas en el núcleo arqueado (infundibular) que expresa el receptor de estrógeno α (ERα), el receptor de neuroquinina 3 (NK3R), kisspeptina, neuroquinina B (NKB) y dinorfina. En el hipotálamo de las mujeres posmenopáusicas, estas neuronas de kisspeptina/NKB/ dinorfina (KNDy) experimentan una hipertrofia somática inusual y expresan un aumento de las transcripciones de genes de kisspeptina y NKB.18 Los cambios en las neuronas KNDy en mujeres posmenopáusicas son secundarios al retiro de estrógenos ováricos y no se deben al envejecimiento per se.
Experimentos en roedores han demostrado que las neuronas KNDy se proyectan en estructuras críticas para la regulación de la temperatura corporal, incluido el núcleo preóptico mediano (MnPO), un componente importante de una vía termosensorial de defensa contra el calor. Además, la activación farmacológica de las neuronas que expresan NK3R en el MnPO provoca una disminución robusta en la temperatura de la piel de la cola del roedor. Si bien estos datos indican que la señalización de NK3R puede influir en la temperatura corporal a nivel de MnPO, no hay información sobre si las neuronas KNDy modulan la temperatura corporal o median los efectos del estrógeno en el sistema termorregulador19(figura 2).
Discusión
Convencionalmente, la terapia de reemplazo hormonal se ha utilizado ampliamente para ayudar a restablecer el equilibrio hormonal y, por lo tanto, mejorar los sofocos.20 Sin embargo, la terapia de reemplazo hormonal puede no ser adecuada en mujeres con mayor riesgo de enfermedad cardiovascular, enfermedad tromboembólica o mayor riesgo de ciertos tipos de cáncer, como el cáncer de mama y el endometrial. Por lo tanto, su eficacia está limitada por la duración del tratamiento recomendado y sí existen contraindicaciones que prohíban su uso. Las opciones de tratamiento alternativas incluyen inhibidores selectivos de la recaptación de serotonina, gabapentina, terapia cognitiva conductual, remedios herbales, acupuntura, así como modificaciones en la dieta y el estilo de vida.20 A la luz de la importante carga de síntomas que experimentan las mujeres posmenopáusicas debido a los sofocos, la necesidad de nuevos agentes ha sido un foco de investigación en los últimos años. Además de la menopausia, las mujeres que han recibido terapia de privación hormonal para el cáncer de mama también experimentan síntomas de sofocos. Sin embargo, el reemplazo de estrógenos generalmente no se recomienda en estos casos, por lo que se requieren opciones de tratamiento alternativas y eficaces. La comprensión de las vías neuroendocrinas implicadas en la regulación de la reproducción y la secreción de hormonas sexuales ha avanzado significativamente en los últimos 15 años como lo describimos previamente y, por lo tanto, ha ayudado a identificar posibles objetivos terapéuticos nuevos para futuras investigaciones. Tales objetivos incluyen la vía de señalización de la neuroquinina B (NKB).20 Como se ha demostrado que la estimulación de la señalización NKB/NK3R induce sofocos, el antagonismo de esta vía de señalización emerge naturalmente como un objetivo terapéutico potencial para ayudar a mejorar estos síntomas. Como se mencionó anteriormente, el antagonismo central de la señalización de NKB dentro del mPOA de las ratas puede prevenir la respuesta fisiológica de sofocos que se genera por la activación de la neurona kisspeptina en el núcleo arqueado. Esto se puede traducir a un modelo humano, por lo que la respuesta de sofocos puede atenuarse por el antagonismo de los receptores de neuroquinina.20 Como se expuso en esta revisión, se han descrito nuevas rutas y nuevas teorías de la etiología de los síntomas vasomotores que se presentan en la menopausia, así como nuevas terapias basadas en estas nuevas rutas neuroendocrinológicas que han mostrado tener buena respuesta en la mejoría de los síntomas vasomotores.
Referencias
- Fritz MA, Speroff L. Endocrinología ginecológica clínica y esterilidad. 8th ed. Filadelfia. Lippincott Williams & Wilkins. 2012; p 639-662.
- Eun-Ok Im. Ethnic Differences in Symptoms Experienced During the Menopausal Transition. Health Care Women Int. 2009 April; 30(4):339-55. Available from: https: //doi.org/10.1080/07399330802695002.
- Gómez G. Endocrinología clínica e infertilidad. 1.a ed. Catorse; capítulo 10.
- Moore AM, Coolen LM, Lehman MN. Kisspeptin/Neurokinin B/Dynorphin (KNDy) cells as integrators of diverse internal and external cues: evidence from viral-based monosynaptic tract-tracing in mice. Sci Rep. 2019 Oct 14;9(1):14768. Available from: https:// doi.org/10.1038/s41598-019-51201-0
- Satake H, Hisada M, Minakata TK, Ukena K, Tsutsui K. Characterization of a cDNA encoding a novel avian hypothalamic neuropeptide exerting an inhibitory effect on gonadotropin release. Biochem J. 2001;354:
- 85.
- Tsutsui K, Ubuka T, Yin H, Osugi T, Ukena K, Bentley G. Mode of action and functional significance of avian gonadotropin inhibitory hormone (GnIH): a review. J Exp Zool A Comp Exp Biol. 2006;305:801-6.
- Romeu A, López Villaverde V, Monzó A, Carmona Ruiz IO, Romeu M. Regulación de la actividad GnRH. Los sistemas Kisspeptina/ GPR54 y GnIH/GPR147. Rev Iberoam Fert Rep Hum. 2016;33:33-41.
- Chan Y, Broder-Fingert S, Wong K, Seminara S. Kisspeptin/Gpr54-independent gonadotrophin-releasing hormone activity in Kiss1 and Gpr54 mutant mice. J Neuroendocrinol. 2009; 21:1015-23.
- Seminara S, Messager S, Chatzidaki E, Thresher R, Acierno JJ, Shagoury J. The GPR54 gene as a regulator of puberty. N Engl J Med. 2003;349:1614-27.
- Millar R, Babwah A. KISS1R: Hallmarks of an Effective Regulator of the Neuroendocrine Axis. Neuroendocrinology. 2015;101:193-210.
- A. Rometo N. Rance. Changes in prodynorphin gene expression and neuronal morphology in the hypothalamus of postmenopausal women. J Neuroendocrinol. 2008;20:1376-81.
- Lehman M, Merkley C, Coolen L, Goodman R. Anatomy of the kisspeptin neural network in mammals. Brain Res. 2010;1364:90-102.
- Darker J, Larminie C, Wilson S, Bergsma D, Emson P, Faull R. AXOR12, a novel human G protein-coupled receptor, activated by the peptide KiSS-1. J Biol Chem. 2001;276: 28969-75.
- Cravo R, Margatho L, Osborne-Lawrence S, Donato JJ, Atkin S, Bookout A. Characterization of Kiss1 neurons using transgenic mouse models. Neuroscience. 2011;173:37-56.
- Lehman M, Coolen L, Goodman R. Minireview: kisspeptin/neurokinin B/dynorphin (KNDy) cells of the arcuate nucleus: a central node in the control of gonadotropin-releasing hormone secretion. Endocrinology. 2010;151: 3479-89.
- Dufourny L, Caraty A, Clarke I, Robinson J, Skinner D. Progesterone- receptive betaendorphin and dynorphin B neurons in the arcuate nucleus project to regions of high gonadotropin-releasing hormone neuron density in the ovine preoptic area. Neuroendocrinology. 2005;81:139-49.
- Skorupskaite K, George J, Anderson R. Role of a neurokinin B receptor antagonist in the regulation of ovarian function in healthy women. Lancet. 2015;385. Suppl 1:S92.
- Skorupskaite K, George JT, Veldhuis JD, Millar RP, Anderson RA. Neurokinin 3 Receptor Antagonism Reveals Roles for Neurokinin B in the Regulation of Gonadotropin Secretion and Hot Flashes in Postmenopausal Women. Neuroendocrinology. 2018;106(2):148-157.
- Mittelman-Smith AM, Williams H, Krajewski- Hall SJ, McMullen NT, Rance NE. Role for kisspeptin/neurokinin B/dynorphin (KNDy) neurons in cutaneous vasodilatation and the estrogen modulation of body temperature. PNAS, 2012;109(48):19846-51.
- Modi M, Dhillo WS. Neurokinin 3 Receptor Antagonism: A Novel Treatment for Menopausal Hot Flushes. Neuroendocrinology. 2019;109:242-8.
Afiliaciones y notas
* Residente rotante, Endocrinología Reproductiva. Universidad del Valle. ** Profesor titular y distinguido. Ginecología, Endocrinología. Departamento OB GIN. Universidad del Valle.
Cómo citar este artículo
Roldán G, Gómez Tabares G. Síntomas vasomotores en la menopausia: una mirada a la fisiología. Rev Col Menop. 2020;26(2):7-15.
Roldán, G., & Gómez Tabares, G. (2020). Síntomas vasomotores en la menopausia: una mirada a la fisiología. Revista Colombiana de Menopausia, 26(2), 7–15.
El archivo RIS se importa en Zotero, Mendeley o EndNote. Revisa los nombres de los autores: la cita se arma automáticamente a partir del artículo.