El trabajo de parto es un complejo proceso fisiológico que implica interacciones entre la madre, el feto y la placenta. Múltiples eventos endocrinos juegan un papel importante en el mantenimiento de la quiescencia uterina y el inicio del trabajo de parto, y en consecuencia aumento de la contractilidad uterina y la maduración cervical. Entre los factores que influyen en el inicio del trabajo de parto, se ha propuesto que se inicia por una señal que el feto envía indicando que está maduto, asociado a otros mecanismos que implican un cambio de la progesterona a la dominancia estrogénica, la acción de la hormona liberadora de corticotropina (CRM), el aumento de la sensibilidad a la oxitocina, la formación de uniones gap y el aumento de la actividad de las prostaglandinas. Los cambios adicionales en el cérvix implican una disminución de la acción de la progesterona y las acciones de las prostaglandinas y la relaxina, a través de alteraciones del tejido conectivo, que conducen al ablandamiento cervical y la dilatación. Las vías neuronales, hormonales, inflamatorias e inmunitarias participan en el inicio del trabajo del parto y la unidad útero-placentaria desempeña un papel importante en la síntesis y liberación de los mediadores del trabajo de parto.
Labor is a complex physiological process involving interactions between the mother, the fetus and the placenta. Multiple endocrine events play an important role in the maintenance ofuterine quiescence and onset of labor, and consequently increased uterine contractility and cervical maturation. Among the factors that influence the onset of labor, it has been proposed thatitis initiated by a signal sent by the fetus indicating thatitis mature, associated with other mechanisms involving a change from progesterone to estrogenic dominance, the action of Corticotropin releasing hormone (CRH), increased sensitivity to oxytocin, gap junction formation and increased prostaglandin activity. Additional changes in the cervix involve a decrease in the action of progesterone and the actions of prostaglandins and relaxin, through alterations of the connective tissue, leading to cervical softening and dilatation. The neuronal, hormonal, inflammatory and inmune pathways are involved in the onset of labor and the utero-placental unit plays an important role in the synthesis and release of mediators of labor
Introducción
El embarazo y el trabajo de parto son eventos fisiológicamente extraordinarios durante los cuales el aloinjerto fetal debe ser primero tolerado y luego nutrido, de manera que permita desarrollarse hasta cuando esté lo suficientemente maduro, posterior a lo cual el proceso del trabajo de parto permitirá liberar al feto del cuerpo de la madre. Este proceso del trabajo de parto es una secuencia de eventos elegantemente coreografiados que incluyen la remodelación y la dilatación del cérvix, la ruptura de las membranas fetales y la aparición y mantenimiento de las contracciones uterinas, culminando en la expulsión del feto y la placenta, todo el proceso es seguido por la involución del útero!.
En el pasado, se creía que la placenta era un órgano en gran medida pasivo, responsable principalmente de la administración de nutrientes al feto. Con el progreso de la investigación obstétrica, este concepto ha cambiado gradualmente a uno que reconoce la placenta como un órgano endocrino transitorio y un regulador central de la fisiología materno-placentario-fetal. Por lo tanto, la placenta garantiza los medios fisiológicos apropiados para el crecimiento normal y el desarrollo de tejidos fetales, placentarios y maternos necesarios para un embarazo exitoso. De hecho, la placenta representa un órgano metabólicamente muy activo durante el parto. Es una fuente de un gran número de moléculas de «información» que, cuando se liberan, pueden ejercer sus efectos biológicos sobre la placenta misma, pero también pueden entrar en la circulación materna y fetal, actuando así como factores autocrinos, paracrinos y endocrinos”. La placenta produce una gran variedad de moléculas que incluyen hormonas esteroideas, hormonas hipotalámico-hipotisiarias, neuropéptidos, factores de crecimiento y citoquinas, involucradas en el parto*. Las hormonas esteroideas incluyen las hormonas gonadales femeninas comunes, la progesterona y los estrógenos. Cabe destacar que la placenta produce también hormonas que se sabe son producidas por los órganos neuroendocrinos, como la oxitocina, la hormona liberadora de gonadotropina (GnRH), opioides y la hormona liberadora de corticotropina (CRH). Sin embargo, el propio feto desempeña un papel importante en el inicio del trabajo de parto, a través de la secreción de neurohormonas y otros estimuladores de la síntesis de prostaglandinas*.
Fases del trabajo de parto
En el embarazo existe un equilibrio dinámico entre las fuerzas que causan la quiescencia uterina y las fuerzas que producen una contractilidad uterina coordinada. También hay un equilibrio entre las fuerzas que mantienen el cérvix cerrado para evitar el vaciado uterino y las fuerzas que ablandan el cérvix y le permiten dilatar. Para que el parto se produzca, ambos balances deben ser inclinados en favor del inicio de la actividad uterina”. En consecuencia, la inflamación, la distensión mecánica del útero al término del embarazo y la señalización hormonal paracrina y autocrina entre la unidad fetoplacentaria y la madre parecen promover el inicio del trabajo de parto mediante la activación coordinada de las vías estimuladoras y la pérdida de la quiescencia uterina, las cuales permiten que las contracciones ocurranó.
En el embarazo se pueden considerar cuatro fases del trabajo del parto (Fig. 1). Durante la primera fase de parto (fase O) - fase quiescente) el útero se mantiene en estado de reposo a través de la acción de la progesterona y otros factores menores como la prostaciclina (PGI?), la relaxina, el péptido relacionado con la hormona paratiroidea (PTHrP), el péptido relacionado con el gen de la calcitonina, el péptido intestinal vasoactivo y el óxido nítrico (NO). Todos estos agentes actúan mediante un aumento de las concentraciones intracelulares de adenosina monofosfato cíclico (CAMP) o guanosina monotfosfato cíclico ((GMP) que inhiben la liberación de calcio intracelular para la contractilidad miometrial. La segunda fase (fase 1 - fase de activación) del parto está asociada con la activación de la función uterina. Un aumento del estrógeno y CRH, posiblemente, con el estiramiento mecánico del útero pueden conducir a la regulación de un panel de genes necesarios para las contracciones. Entre los receptores miometriales se incluyen la conexina 43 y los receptores de prostaglandinas y oxitocina (OTRs). En la tercera fase del parto (fase 2 - fase de estimulación), el útero puede ser estimulado por uterotónicos incluyendo prostaglandinas (PGs), oxitocina (OT) y CRH. Los eventos bioquímicos en el útero se asemejan a una reacción inflamatoria, con aumento de la síntesis de citoquinas. La cuarta fase del parto (fase 3 - fase de involución) incluye la involución uterina, proceso que sigue a la expulsión del feto y la placenta. Se ha atribuido principalmente a los efectos de la oxitocina”.
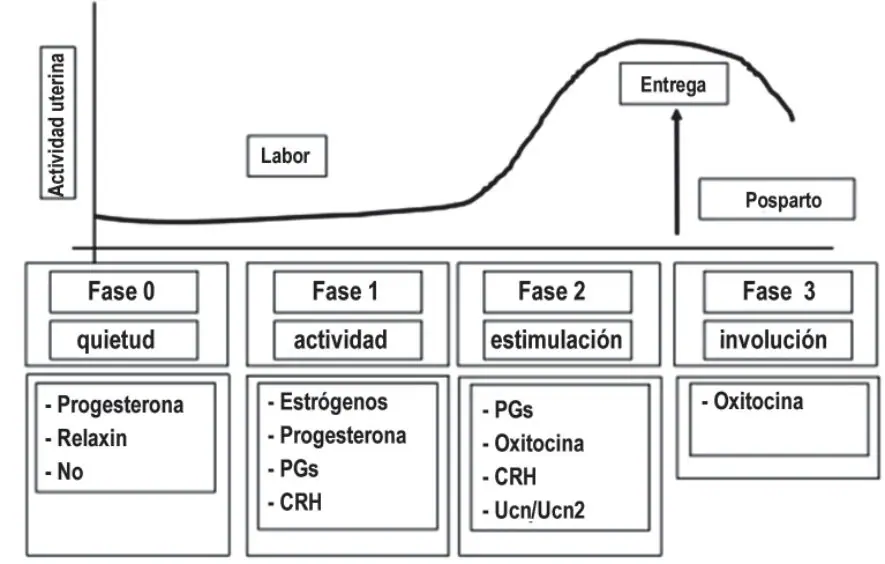
CRH, hormona liberadora de corticotropina. (Modificado de VannucciniS, et al. Endocrinology of human parturition. Ann Endocrinol. Paris, 2016.)
Hormonas involucradas en el trabajo de parto
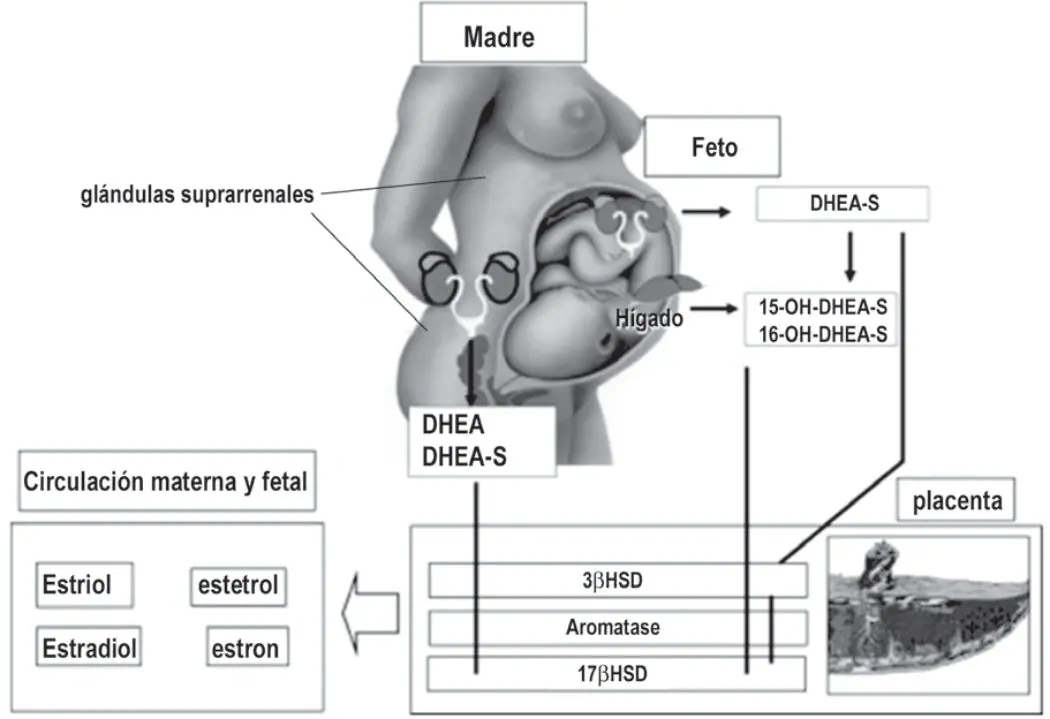
Estrógenos Los estrógenos son esenciales para el desarrollo y la función del útero, desempeñando un papel clave en la contractilidad uterina. El embarazo humano se caracteriza por un estado hiperestrogénico típico. La placenta es la principal fuente de estrógenos, y las concentraciones de estrógenos aumentan en la circulación materna con el aumento de la edad gestacional. La estrona placentaria y el 17B-estradiol se derivan principalmente de los andrógenos C19 maternos (testosterona y androstenediona), mientras que el estriol se deriva casi exclusivamente del precursor de estrógenos C19 fetal. La placenta humana carece de cantidades significativas de 170 -hidroxilasa/17-20 liasa, la enzima necesaria para la síntesis de estradiol a partir de progesterona. Por lo tanto, la placenta humana depende del sulfato de dehidroepiandrosterona (DHEAS) de las glándulas suprarrenales fetales y maternas para el suministro de precursores para la síntesis de estrógenos. Las glándulas suprarrenales fetales producen DHEAS, que es hidroxilado a 16-OH-DHEAS en el hígado fetal y luego aromatizado por la placenta para producir estriol, el principal estrógeno circulante del embarazo (Fig. 2).
Tanto las concentraciones de la hormona dehidroepiandrosterona (DHEA) y estradiol aumentan hacia el término”. Sin embargo, bajos niveles de DHEA y de la relación de estradiol/ estriol son reportados en pacientes con embarazos postérmino que no responden a la inducción del trabajo de parto!11, lo que sugiere que su miometrio no ha sido preparado y la producción de DHEA es deficiente. Los glucocorticoides pueden influir en este paso, aumentando la conversión de dehidroepiandrosterona a estrógeno a través de la inducción de la expresión de aromatasa en la placenta humana”. Los estrógenos no causan por sí mismos contracciones uterinas en el parto, sino que promueven una serie de cambios miometriales, incluyendo aumento del número de receptores de prostaglandinas, receptores de oxitocina y la regulación de las enzimas responsables de las contracciones musculares (miosina quinasa de cadena ligera y calmodulina)3 que aumentan la capacidad del miometrio para generar contracciones. De hecho, sulfato de dehidroepiandrosterona; DHEA, dehidroepiandrosterona; 3BHSD, 3 Beta-hidroxiesteroide deshidrogenasa; 178 HSD, 17 Beta-hidroxiesteroide deshidrogenasa (Modificado de VannucciniS, etal. Endocrinology of human parturition. Ann Endocrinol. Paris, 2016).
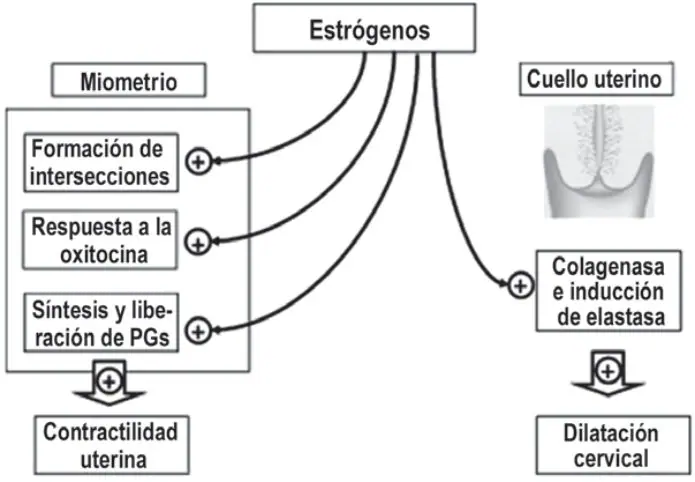
transportadores de iones y aumenta la conexina 43 (componente de las uniones gap). El aumento de las uniones gap entre las células miometriales facilita la transmisión de los estímulos eléctricos, permitiendo unas contracciones uterinas coordinadas”. Los estrógenos también controlan la maduración cervical, por disposición del colágeno, la elastina y los glicosaminoglicanos, mediada por la inducción de la colagenasa y la elastasa!* (Fig. 3).
Progesterona
La progesterona, una de las principales hormonas del embarazo, es cuello uterino. (Modificado de VannucciniS, et al. Endocrinology ofhuman parturition. Ann Endocrinol. Paris, 2016.) producida inicialmente por el cuerpo lúteo y posteriormente mediante la conversión placentaria del colesterol procedente de la circulación materna a través de la actividad de dos enzimas específicas, la escisión de la cadena lateral del citocromo P450 (P450scc) y 3betahidroxiesteroide deshidrogenasa (3BHSD). La progesterona sostiene el embarazo y mantiene la quiescencia uterina durante la gestación. En efecto, disminuye la contractilidad miometrial e inhibe la formación de uniones gap miometriales. Incluso, la progesterona estimula la síntesis de óxido nítrico por el útero, factor importante en la quiescencia del útero, y regula la producción de prostaglandinas, así como el desarrollo de los canales de calcio y los receptores de oxitocina. En el cuello uterino, la progesterona aumenta el inhibidor tisular de la metaloproteinasa de matriz 1 (TIMP-1), inhibiendo la colagenolisis'>.
Los niveles séricos de progesterona no varían significativamente a final del tercer trimestre del embarazo y no hay evidencia de un descenso en el plasma materno ni en los tejidos uterinos durante el trabajo de parto. En el embarazo, la progesterona está en equilibrio dinámico con el estrógeno en el control de la actividad uterina. Los factores que desencadenan el trabajo de parto deben superar el efecto de la progesterona que predomina durante el período de la quiescencia uterina del embarazo temprano'*. La actividad de la 17 beta-hidroxiesteroide deshidrogenasa (17BHSD) en las membranas fetales aumenta alrededor del momento del parto, lo que conduce a un aumento del 17B-estradiol y 20-dihidroprogesterona, alterando el equilibrio estrógeno/progesterona. Por lo tanto, un retiro de la progesterona funcional a nivel del receptor se cree que está involucrado en el proceso del parto!7. Se han propuesto diversos mecanismos para esto, incluyendo la disminución de la expresión de los receptores de progesterona, el cambio en las isoformas del receptor de progesterona'S, el metabolismo local de la progesterona”, los cambios en los niveles de cofactores que afectan la función de los receptores de progesterona”. La acción de la progesterona está mediadas por dos proteínas intranucleares funcionalmente diferentes pero estructuralmente relacionadas, el receptor de progesterona (PR) A y PRB. El bloqueo funcional de la progesterona está mediada por un aumento en la relación de expresión PRA: PRB miometrial, induciendo la activación funcional de estrógenos mediante el efecto de la expresión del receptor de estrógeno””?. Es más, la progesterona puede ser metabolizada a un metabolito menos activo, la 20-dihidroprogesterona, que aumenta después del inicio del trabajo de parto”, presentándose otro mecanismo potencial para el bloqueo funcional de la progesterona.
Oxitocina
La oxitocina (OT), una hormona peptídica producida por las neuronas hipotalámicas, y sus receptores miometriales de oxitocina (OTR) desempeñan un papel importante en el parto, aunque su papel preciso todavía no está completamente comprendido. Se observa una mayor secreción pulsátil de la oxitocina por la neurohipótisis y una mayor expresión y afinidad de receptores en el miometrio y la decidua en el trabajo de parto. No se evidencia aumento de la oxitocina circulante hacia el final del embarazo, pero la concentración de los receptores de oxitocina uterina aumenta hacia el final del embarazo*, lo que resulta en una mayor eficacia de la acción de oxitocina a medida que progresa el embarazo. El estrógeno aumenta la expresión del receptor de la oxitocina y la progesterona suprime este aumento inducido por estrógenos en células cultivadas de miometrio humano. La oxitocina placentaria actúa directamente sobre el miometrio produciendo contracciones e indirectamente por la regulación de la producción de prostaglandinas, especialmente la prostaglandina F2 (PGF2 O) por la decidua (Fig. 4). La PGF2 W, a su vez, es producida principalmente por la decidua materna y actúa sobre el miometrio para regular los receptores de oxitocina y las uniones gap, promoviendo así las contracciones uterinas”,
Relaxina
La hormona polipeptídica relaxina (RLX) pertenece a la familia del factor de crecimiento similar a la insulina (IGF), tiene numerosos efectos sobre el sistema reproductivo, incluyendo la vascularización endometrial y la remodelación del tejido conectivo que conduce
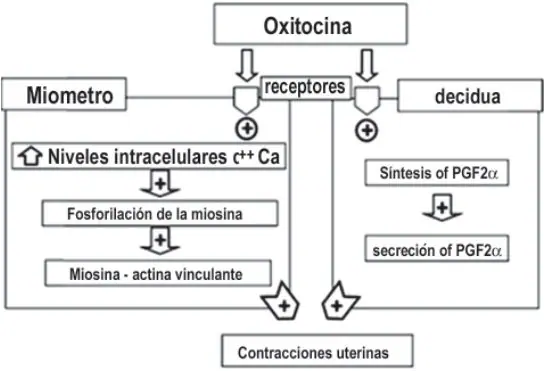
tilidad miometrial. PGF2 Q, Prostaglandina F2. (Modificado de Vannuccini $, et al. Endocrinology ofhuman parturition. Ann Endocrinol. Paris, 2016.)
a cambios estructurales, en lo que respecta a relajar las articulaciones y tendones, así como el ablandamiento del cérvix en preparación para el parto”. La relaxina circulante es un producto del cuerpo lúteo del embarazo, que está presente en el ovario durante el transcurso del embatazo. Sin embargo, la relaxina es también un producto de la placenta y la decidua y actúa localmente**?7. Algunos de los efectos de la relaxina incluyen la estimulación de procolagenasa y prostromelisina (proMMP-1, proMMP- 2) para la maduración cervical, así como una disminución del inhibidor de la metalopeptidasa 1 (TIMP-1)%. La relaxina también es capaz de inhibir las contracciones del miometrio en mujeres no embarazadas, peto, paradójicamente, la relaxina no inhibe las contracciones del tejido uterino en mujeres embarazadas, esto puede deberse a los efectos competitivos de la progesterona”.
Prostaglandinas
Se cree que las prostaglandinas (PG) juegan un papel importante en el trabajo de parto, actúan estimulando la contractilidad del miometrio y la maduración del cérvix (Fig. 5). El principal precursor de PGs es el ácido araquidónico, que se almacena en las moléculas de glicerotostolípidos. Las membranas fetales están enriquecidas con dos glicerofostolípidos principales, fosfatidilinositol y fosfatidiletanolamina. A medida que avanza la gestación, los niveles progresivamente crecientes de estrógenos estimulan el almacenamiento, en las membranas fetales, de estos glicerofosfolípidos que contienen ácido araquidónico. Una serie de PGHS, Prostaglandina sintetasa; PGE2, Prostaglandina E2; PGF20,, Prostaglandina F20; PGDH, Prostaglandina deshidrogenasa; EP'*Receptores de prostaglandinas E; FP, Receptor de prostaglandina F. (Modificado de Vannuccini S, et al. Endocrinology of human parturition. Ann Endocrinol. Paris, 2016).
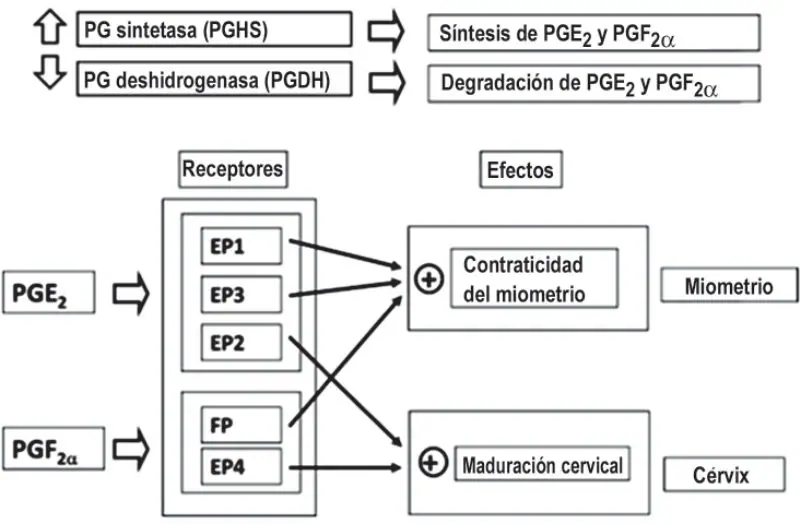
lipasas de membrana fetal, incluyendo tfostolipasa A2 y fosfolipasa C controlan la liberación de ácido araquidónico desde el almacenamiento en fosfolípidos de la membrana fetal. Una vez en estado libre, el ácido araquidónico está disponible para la conversión a PG. El segundo paso implica que el ácido araquidónico libre se convierta en la PG intermedia (PGH2), en una reacción catalizada por la enzima ciclooxigenasa (COX). Finalmente, la PGH2 es convertida en prostaglandina E2 (PGEZ), prostaglandina F20 (PGF20), PGI2, PGD2 y tromboxano por acción de enzimas sintasas específicas”.
Los niveles de prostaglandinas se incrementan antes y durante el trabajo de parto en el útero y las membranas*!. Muchos factores afectan su producción: los niveles disminuyen por acción de la progesterona y aumentan por acción de los estrógenos, las citoquinas inflamatorias y CRH??34%, PGE2 y PGF20 son producidos por membranas fetales y otros tejidos intrauterinos y sus niveles están elevados en el líquido amniótico al término del embarazo, así como en el parto. El metabolismo de las prostaglandinas juega un papel importante en la alteración de la producción de PG bioactivas en el útero. PGI2 y tromboxano son inactivados espontáneamente, mientras que PGE2 y PGF2 son metabólicamente inactivadas por acción de la enzima 15-hidroxi-prostaglandinadeshidrogenasa (15-PGDH), que también está sujeta a la regulación en los tejidos uterinos. El efecto neto de las PGs en el trabajo de parto puede ser controlado por los cambios en los diferentes pasos en la síntesis de PG y su metabolismo. Se ha demostrado que los niveles de MRNA de COX-2 aumentan en los tejidos intrauterinos al término del embarazo, antes y durante el trabajo de parto. La regulación de COX-2 asociada al trabajo de parto, implica factores derivados de amnios que estimulan y mantienen la transcripción de COX-2, lo que conduce a la acumulación de MRNA de COX-2 y aumenta la actividad enzimática a lo largo de la aparición y progresión del trabajo de parto hasta el periodo expulsivo. Las citoquinas pro-inflamatorias inducen la expresión de COX-2 en las células amnióticas, corio-deciduales y miometriales. El amnios es una fuente importante de PGs y muestra un aumento sustancial en la síntesis de PGE2 con el inicio del trabajo de parto*.
Las prostaglandinas, principalmente PGE2 y en menor medida PGF20, parecen ser el punto final de la cascada CRH y caracterizan la acción de la mayoría de las moléculas que participan en los mecanismos del trabajo de parto a término y prematuro, sin embargo, también incrementan su propia producción. También disminuyen la actividad de la 11-beta-hidroxiesteroide-deshidrogenasa 2 (11B-HSD-2) placentaria, la enzima que convierte el cortisol en cortisona, dando como resultado un aumento adicional de las concentraciones locales de cortisol, lo que representa otro mecanismo de retroalimentación positiva. Por otra parte, PGE2 estimula la producción de CRH fetal, promoviendo aún más la retroalimentación positiva?33536,
CRH y urocortinas
La hormona liberadora de corticotropina (CRH) es uno de los neuropéptidos más destacado involucrado en el trabajo de parto, actúa sobre las respuestas hormonales, vasculares e inflamatorias inducidas por estrés. Las urocortinas (Ucn, Ucn2, Ucn3) comparten secuencias homólogas con CRH y muestran efectos biológicos similares. La placenta es capaz de sintetizar y liberar varias neurohormonas y neuropéptidos, que actúan localmente en la modulación de la liberación de las hormonas hipotisarias, semejante a lo que ocurre con el eje hipotálamohipótfisis-glándula objeto; además, son químicamente idénticos y tienen las mismas actividades biológicas que, sus contrapartes neuronales”. CRH estimula la secreción de corticotropina (ACTH) hipofisiaria y la producción de cortisol suprarrenal. En la madre, el cortisol inhibe la liberación de CRH a nivel hipotalámico y ACTH a nivel hipofisiario, creando un feedback negativo”. Por el contrario, el cortisol estimula la liberación de CRH a partir de membranas deciduales, trofoblásticas y fetales. A su vez, la CRH, promueve la activación del eje hipotálamo-hipótfisis-glándula suprarrenal materno y fetal, estableciendo así un potente feedback positivo, En el embarazo normal, el aumento de la producción de CRH a partir de membranas deciduales, trofoblásticas y fetales conduce a un aumento del cortisol circulante al comienzo de la mitad del embarazo. Los efectos de la CRH se ven incrementada por un descenso en la proteína plasmática de unión a CRH en el plasma materno cerca al término del embarazo. Al final del embarazo y en el trabajo de parto, los niveles circulantes de CRH, ACTH y cortisol se incrementan, aunque no son necesariamente indicativos de la activación del eje hipotálamohipótfisis-glándula suprarrenal materno. La placenta y el endometrio sintetizan y secretan CRH, que estimula la ACTH fetal y la secreción de cortisol, La CRH placentaria tiene efectos complejos, incluyendo un papel en el inicio del trabajo de parto, que se asemeja al temporizador de un reloj biológico contando desde las primeras etapas de la gestación y señalando el momento del inicio del trabajo de parto**?. Una medición longitudinal de la CRH durante el embarazo sugiere que el reloj placentario puede ser establecido para correr rápido o lento tanto en el primer o segundo trimestre del embarazo. Una vez establecida la velocidad del reloj placentario, se puede predeterminar el tiempo del parto.
El aumento muy rápido de la CRH en la última etapa del embarazo se asocia con una oleada de estriol (E3) y con una relación progesterona P/E3 y estriol/ estradiol (E3/E2) críticamente alteradas que crean un ambiente estrogénico al inicio del trabajo de parto**. CRH y sus péptidos relacionados actúan sobre los receptores de CRH (CRH-R1 y CRH-R2) para estimular el E2 e inhibir la producción de progesterona en las células placentarias. Los receptores CRH-R1 y CRH-R2 estimulan vías de señalización divergentes. El receptor CRH- R1 aumenta la producción de E2 a través de la vía de señalización adenil ciclasa-proteína quinasa A (AC-PKA) y la fostolipasa C-proteína quinasa C (PLC-PKC) y disminuye la producción de progesterona a través de la vía PLC-PKC. El receptor CRH-R2 aumenta la producción de E2 e inhibe la producción de progesterona a través de la vía PLC-PKC*1. CRH regula la contractilidad miometrial, ejerciendo diversos roles en diferentes etapas de la gestación. Es así que, la CRH está implicada tanto en la relajación como en la contracción del miometrio, y se ha demostrado que es probable que dependa de diferentes patrones de expresión y efectos biológicos de los receptores de CRH. El receptor CRH-R1 contribuye al mantenimiento de la relajación miometrial durante el embarazo mediante la activación de la vía adenil ciclasa/c AMP. Por el contrario, al término del embarazo CRH induce la fosforilación del receptor CRH-R2, con posterior estimulación de las vías fosfolipasa C/inositol trifosfato, la proteína quinasa 1 y 2 reguladas por señal extracelular (ERK1/2) y el gen homólogo de Ras A (RhoA) y aumento de la fosforilación de la miosina de cadena ligera (MLC20), promoviendo así la contractilidad miometrial*-7, CRH induce la producción de quimioquinas y citoquinas en el miometrio al término del embarazo que posteriormente desencadena la cascada de la inflamación. La inflamación inducida por CRH puede conducir a la activación de la contractilidad uterina, con la producción de quimioquinas y citoquinas proinflamatorias en el miometrio de la mujer embarazada, lo que podría inducir la quimiotaxis de los monocitos al miometrio y promover la inflamación, lo que confirma que el trabajo de parto es un evento inflamatorio*8>0, CRH modula la producción de prostaglandinas a través de las membranas fetales y la placenta, induce la vasodilatación de la circulación fetoplacentaria mediante la activación de la óxido nítrico sintasa y estimula la producción de DHEAS por la glándula suprarrenal fetal, directa o indirectamente a través de la ACTH hipofisaria fetal, participando esta neurohormona en la maduración pulmonar fetal y mecanismos adaptativos en respuesta al estrés del trabajo de parto (Fig. 6). La estimulación de la hipófisis fetal por CRH aumenta la producción de corticotropina y, en consecuencia, la síntesis de cortisol por la glándula suprarrenal fetal y la maduración de los pulmones fetales. A su vez, el aumento de las concentraciones de cortisol en el feto estimula aún más la producción de CRH placentaria. La maduración de los pulmones fetales como resultado del aumento de las concentraciones de cortisol se asocia con un aumento de la producción de la proteína surfactante pulmonar tipo A y los fostolípidos, ambos tienen acciones proinflamatorias y pueden estimular la contractilidad miometrial a través del aumento de la producción de prostaglandinas por las membranas fetales y el propio miometrios!3*, La síntesis de CRH placentaria es estimulada por el cortisol fetal (mecanismo de feedback positivo). Existe una diferencia entre la CRH placentaria y la hipotalámica, la secreción placentaria es estimulada y la secreción hipotalámica fetal es deprimida por el cortisol. Por lo tanto, aunque la producción de CRH fetal pueda reducirse, la CRH placentaria aumenta. Por otra parte, el potencial del feedback negativo del cortisol fetal sobre la producción fetal de ACTH se reduce por el aumento de la producción de globulina unida a los corticosteroides (CBG) al final del embarazo. Los estrógenos placentarios también inducen la expresión de la prostaglandina sintetasa y, a su vez, la producción de prostaglandinas en las células del corión y del amnios. Además, los estrógenos placentarios aumentan la producción de CRH placentaria, estableciendo un segundo mecanismo de feedback positivo*7 (Fig. 6).
En cuanto a las urocortinas (Ucn) son sintetizadas y secretadas por la placenta y las membranas fetales, de manera similar a CRH. Sin embargo, los patrones de secreción de estos dos péptidos son diferentes, ya que los niveles plasmáticos de CRH en plasma siguen aumentando hasta el término del embarazo, mientras que los niveles de Ucn permanecen relativamente constantes durante la gestación y aumentan sólo después del inicio del trabajo de parto*8-0, La Ucn tiene efectos similares a CRH, aumentando la metaloproteinasa de matriz, la ACTH y la secreción de prostaglandina de células cultivadas de la placenta humana, aumentando la contractilidad miometrial“. Del mismo modo, la urocortina 2 (Ucn2) es un factor neuroendocrino que es regulado en el momento del parto y actúa como un agente pro-inflamatorio en la placenta y en el miometrio”. Fundamentalmente, la Ucn2 está regulada por el factor de necrosis tumoral (TNF) a través del factor nuclear-B (NF-kB) en las células del miometrio y el incremento de mediadores pro-inflamatorios y prostaglandina F a través del receptor de expresión CRH-R2, influyendo en la contractilidad uterina (Fig. 6).
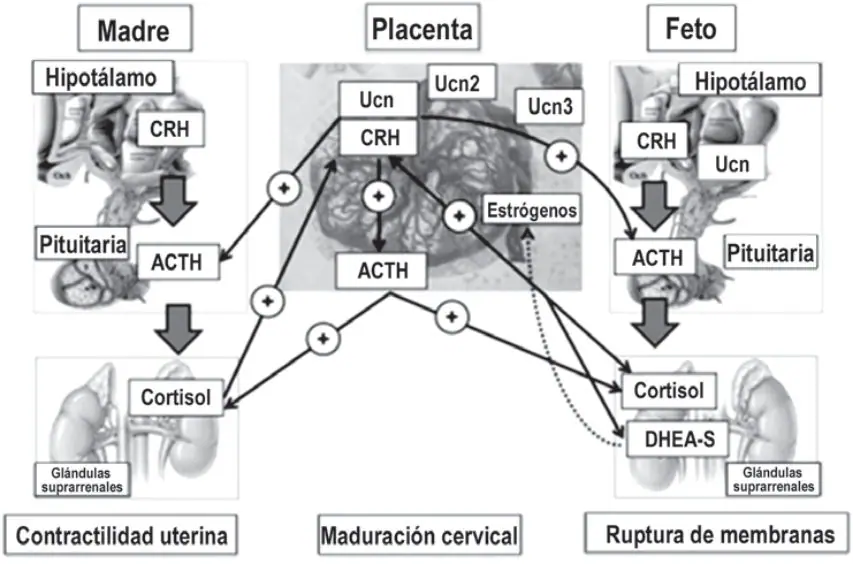
liberadora de corticotropina; ACTH, Corticotropina; Ucn, Ucn2, Ucn3, Urocortinas; DHEA-S, Sulfato de dehidroepiandrosterona. (Modificado de VannucciniS, etal. Endocrinology of human parturition. Ann Endocrinol. Paris, 2016).
Endocrinologia del inicio de trabajo departo
Vías inflamatorias e inicio del trabajo de parto
Tanto el parto prematuro como el de término están asociados con una respuesta inflamatoria. Esto es ejemplificado por concentraciones aumentadas de citoquinas proinflamatorias (por ejemplo, Interleucina 1, IL-1) en el líquido amniótico y la infiltración del miometrio, cérvix y membranas fetales por neutrófilos y macrófagos. Las células inmunes invasoras secretan citoquinas y quimiocinas”, dando como resultado la activación del factor nuclear potenciador de las cadenas ligeras kappa de las células B activadas (NF-kB) y otros agentes proinflamatorios como los factores de transcripción en el miometrio y células epiteliales cervicales y amnios. NF-kB, activado a su vez, aumenta la expresión de genes que promueven la contractilidad miometrial, incluyendo el receptor prostaglandina F20!!, la proteína de unión conexina 43, el receptor de oxitocina“, y ciclooxigenasa- 2 (COX-2)%. Al término, el estiramiento mecánico causado por el feto en crecimiento, así como señales hormonales producidas por el feto en desarrollo a corto plazo, promueve la producción de quimiocinas que conduce a la migración de macrófagos y la regulación de las vías de respuesta inflamatoria.
Señales fetales e inicio del trabajo de parto
Hay evidencia creciente que sugiere que el feto puede generar señales que contribuyen al inicio del trabajo de parto. En las ovejas, la maduración del eje del sistema hipotálamopituitario-adrenal durante las últimas 2 a 3 semanas de gestación con aumento de producción de cortisol por la glándula suprarrenal fetal se ha sugerido que desempeñan un papel en el inicio del trabajo de parto. La producción fetal elevada de cortisol se ha propuesto que mejora la expresión de COX-2 en la placenta, dando lugar a una mayor producción de prostaglandinas, que estimulan la expresión de 17 alfa-hidroxilasa/17,20-liasa (producto del gen CYP17).
Esto, a su vez, se propone que mejora la producción placentaria de esteroides C19, que son metabolizados a estrógenos por la aromatasa placentaria P450 (producto del gen CYP19). El incremento de los estrógenos aumentan la contractilidad uterina antagonizando la función de los receptores de progesterona (RPY. Es importante destacar que la oleada de cortisol fetal también aumenta la maduración del pulmón fetal y su capacidad para sintetizar surfactante. En el humano, se ha sugerido que la CRH, que es secretada en cantidades crecientes por la placenta, proporciona a corto plazo una señal para el inicio del parto. El aumento de la CRH se propone que regula la secreción por la hipófisis fetal de ACTH, que mejora la producción de cortisol y DHEA por la glándula adrenal fetal. La DHEA-S es posteriormente metabolizado a DHEA y aromatizado dentro del sincitiotrofoblasto placentario a estrógenos, que como se mencionó anteriotmente, se han propuesto que se oponen a la acción de la progesterona / PR para mantener la quiescencia uterina. Este aumento en la expresión de CRH precede a la inducción de desarrollo se síntesis de la proteína tensioactivo principal, proteína A tensioactivo (SP-A), por el pulmón fetal. Los hallazgos sugieren que SP-A, secretada por el pulmón fetal en el líquido amniótico en grandes cantidades a corto plazo, puede proporcionar una señal pata el inicio del parto” incrementando la producción de citoquinas y activando NF-kB. En los estudios utilizando células de pulmón fetal humano tipo 11 en cultivo, se observó que la expresión del gen SP-A se incrementa por sí misma por la estímulos proinflamatorios; la expresión de SP-A es regulada positivamente por IL-1 mediante la activación de NF-kB% y por las hormonas y factores que aumentan el adenosín monotfosfato cíclico (AMPc). CRH puede contribuir al inicio del trabajo de parto indirectamente para mejorar la producción de ACTH fetal y cortisol adrenal y/o directamente para estimular la maduración pulmonar fetal y la producción de componentes tensioactivos.
Con base en estos hallazgos colectivos, se sugiere que la producción de SP-A por el pulmón fetal maduro a corto plazo proporciona un estímulo hormonal para la activación de una cascada de señales inflamatorias dentro del útero materno que culminan en la contractilidad miometrial mejorada que conduce al parto”. Esta señal hormonal, que se transmite al útero por macrófagos fetales, revela que los pulmones fetales están lo suficientemente desarrollados para soportar la transición crítica de una solución acuosa a un ambiente aeróbico. La quiescencia uterina (Fig. 7) se mantiene durante la mayor parte del embarazo por niveles elevados de progesterona circulante que actúan a través del RP.
Sin embargo, hasta la fecha, los genes objetivos del RP que previenen la contractilidad uterina están por identificarse. Hallazgos recientes sugieren que progesterona/RP para mantener la quietud uterina pueden ser indirectos; inhibiendo la activación de las vías de la respuesta inflamatoria y expresión de los genes contráctiles dentro del útero y el cérvix y bloqueando la producción de quimiocinas que promueven la quimiotaxis de las células inmunes. Utilizando células de miometrio humano inmortalizadas por telomerasa, se observó que la progesterona / RP desempeña un importante papel antiinflamatorio vía antagonismo tanto de la activación de NF-kB como de la inducción de COX-27. Mecanismos para la regulación de progesterona/PR de la quietud uterina durante el embarazo y la inducción de la contractilidad uterina en el parto prematuro y de término.
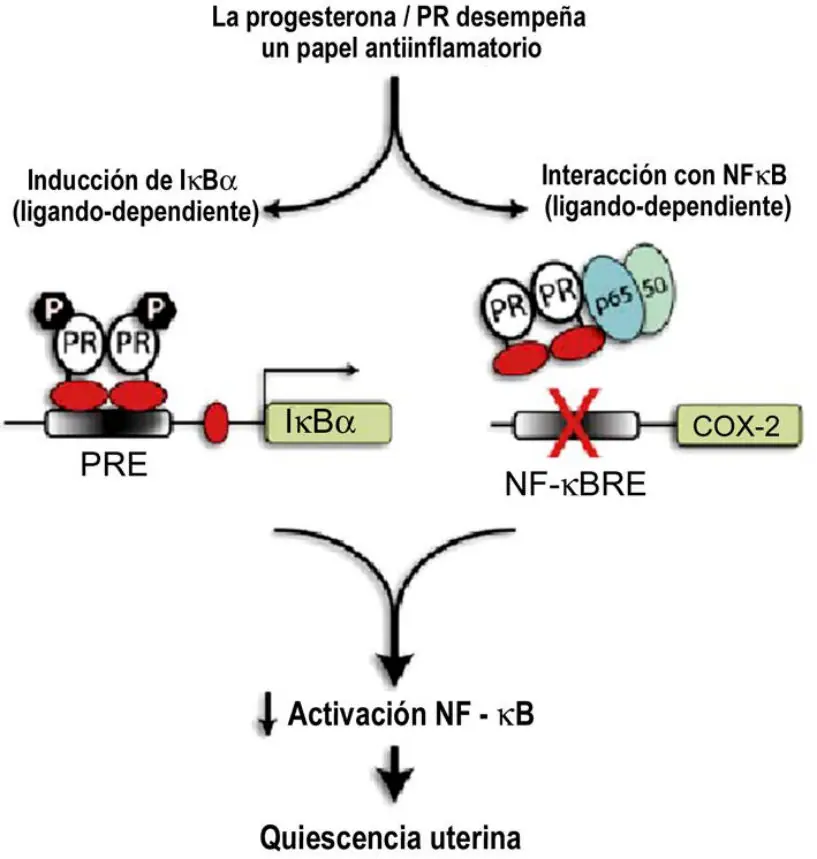
Durante la mayor parte del embarazo, el útero es mantenido en estado de reposo por la PR, que actúa de una manera dependiente de un ligando para bloquear la activación de factores de transcripción inflamatorios (por ejemplo, NF-kB). PR actúa de una manera dependiente de ligando para aumentar la regulación de la expresión de la NF-B, B inhibidor IB en las células del miometrio. Alternativamente, el PR actúa de manera independiente de un ligando dominante (probablemente mediante la interacción directa proteína-proteína) para bloquear la activación de NF-kB, la unión al ADN y la transactivación.
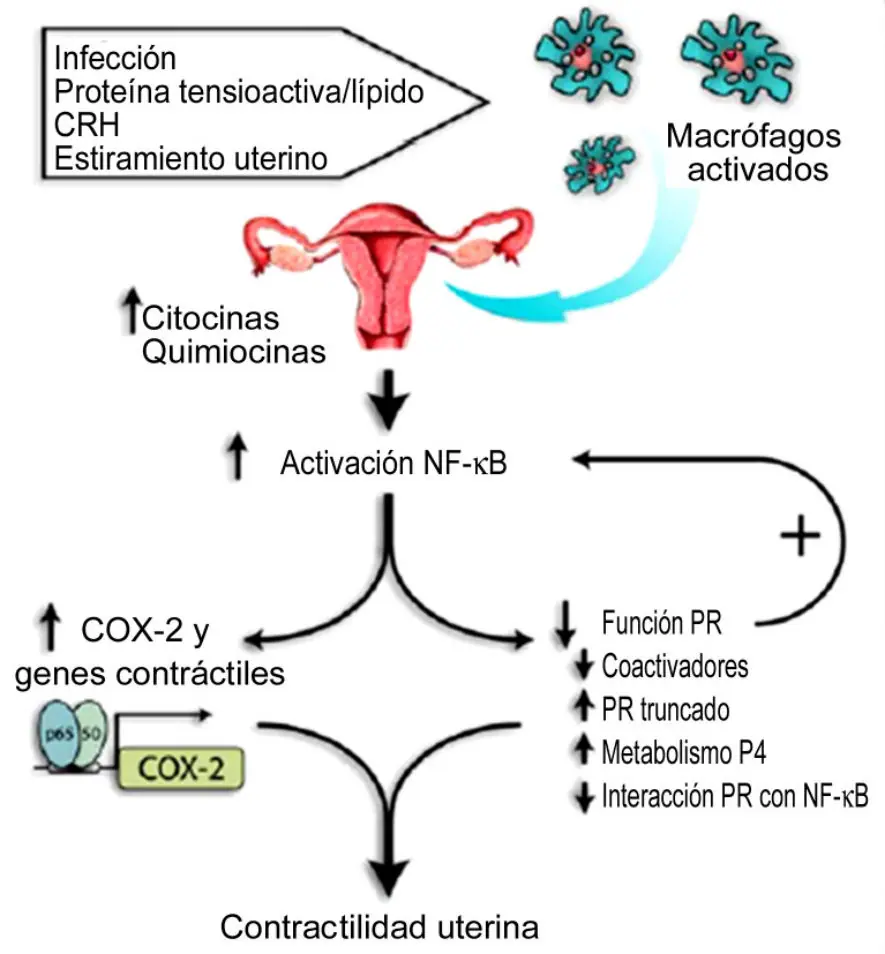
Trabajo de parto (F1g. $)
De los genes contráctiles dentro del útero. El trabajo de parto puede ser iniciado como resultado de una infección bacteriana, resultando en una mayor migración de los macrófagos al útero de la madre con la liberación de citoquinas/ quimiocinas y activación de NF-kB. Sin embargo, a corto plazo, la activación y migración de macrófagos mejorada y el aumento de NF-kB. Actividad son inducidas probablemente por las señales producidas por el feto que madura. Estos incluyen el aumento de la secreción de proteínas tensioactivas y lípidos por el pulmón fetal en fluido amnióticos, aumento de la producción de CRH por la placenta, y el aumento del estiramiento uterino causado por el concepto de crecimiento. Dentro del útero, el NF-KB activado directamente actúa para aumentar la expresión de genes contráctiles y provoca un deterioro de la función PR al efectuar: 1) la regulación negativa de los coactivadores de PR; 2) la expresión aumentada de la inhibición de las isoformas PR; 3) aumento del metabolismo de la progesterona en productos inactivos, y posiblemente; 4) interacción inhibitoria directa con PR. Estos eventos concertados culminan en un aumento adicional en la activación y expresión de genes contráctiles de NF-kB, que conduce al trabajo de parto.
Conclusiones
El trabajo de parto es un complejo proceso fisiológico que involucran signos fetales, placentarios y maternos. Una variedad de sistemas endocrinos juegan un papel en el mantenimiento de la quiescencia uterina y el inicio del parto, con el consiguiente aumento de la contractilidad uterina y la maduración cervical. Hay muchos factores que pueden inclinar la balanza a favor de un parto temprano, tardío o a tiempo. Estos factores, como las prostaglandinas o citoquinas inflamatorias, pueden afectar directamente al inicio del trabajo de parto. Otros factores, como la oxitocina, CRH o la relaxina, puede actuar de forma indirecta. El aumento de la producción de CRH en la placenta, impulsa a un cambio en las concentraciones de cortisol fetal, la maduración pulmonar fetal, las proteínas y tfostolípidos de líquido amniótico, y la expresión del receptor del miometrio que, en unión, a través de un conjunto de vías de activación independientes, se combinan para precipitar el parto. La presencia de múltiples vías independientes, cada una capaz de estimular el parto, ayudan a explicar por qué el inicio del parto en los seres humanos es una consecuencia inevitable de la concepción. CRH es capaz de estimular la producción de ACTH hipotisaria fetal y por lo tanto la síntesis de cortisol fetal, lo que potencializa la maduración pulmonar fetal. El aumento de las concentraciones de cortisol fetal estimula aún más la producción de la CRH placentaria y la maduración pulmonar fetal, se asocia con el aumento de la producción de la proteína surfactante A y fostolípidos. Estos tienen acciones proinflamatorias y pueden estimular la contractilidad del miometrio mediante el aumento de la producción de prostaglandinas por las membranas fetales y el propio miometrio.
CRH medida en plasma materno aumenta exponencialmente a medida que avanza el embarazo, alcanzando un máximo en el momento del parto. En las mujeres destinadas a parto prematuro, el aumento exponencial es más rápido, mientras que en las mujeres destinadas a partos después del término, el aumento es más lento. Estos hallazgos sugieren que un reloj biológico placentario determina el momento del parto.
Referencias
- Kota SK, Gayatri K, Jammula S, Kota SK, Krishna SVS, Meher LK. Review Article Endocrinology of parturition. 2013;17(1):50-60.
- Petraglia F, Florio P, Nappi C, Genazzani AR. Peptide Signaling in Human Placenta and Membranes: Autocrine, Paracrine, and Endocrine Mechanisms*. Endocr Rev [Internet]. 1996 Apr [cited 2016 Dec 141;17(2):156-86. Available from: http:// www.ncbi.nlm.nih.gov/pubmed/8706630
- lliodromiti Z, Antonakopoulos N, Sifakis S, Tsikouras P, Daniilidis A, Dafopoulos K, et al. Endocrine, paracrine, and autocrine placental mediators in labor. Hormones. 2012;11(4):397-409.
- Ravanos K, Dagklis T, Petousis S, Margioula- Siarkou C, Prapas Y, Prapas N. Factors implicatedin the initiation of human parturition in term and preterm labor: a review. Gynecol Endocrinol [Internet]. 2015;31(9):679-83. Available from: http://www.ncbi.nIm.nih. gov/pubmed/26303116 >. Norwitz ER, Robinson JN, Challis JRG. The Control of Labor. N Engl J Med [Internet]. 1999 Aug 26 [cited 2017 Apr 26]:341(9):660-
- Available from: http://www.ncbi.nlm.nih. gov/pubmed/10460818
- López Bernal A, Rivera J, Europe-Finner GN, Phaneuf S, Asbóth G. Parturition: activation of stimulatory pathways or loss of uterine quiescence? Adv Exp Med Biol [Internet]. 1995 [cited 2016 Dec 151;395:435-
- Available from: http://www.ncbi.nim.nih. gov/pubmed/8713997 Terzidou V, Wood NS, Matlow N, Costeloe K, al. et, Escobar GJ, et al. Biochemical and endocrinological preparation for parturition. Best Pract Res Clin Obstet Gynaccol [Internet]. 2007 Oct [cited 2016 Dec 15];21(5):729-56. Available from: http://linkinghub.elsevier. com/retrieve/pii/S1521693407000843 Weiss G. Endocrinology of Parturition. J Clin Endocrinol Metab [Internet]. 2000 Dec [cited 2016 Dec 151;85(12):4421-5. Available from: http://press.endocrine.org/doi/10.1210/ jeem.85.12.7074 Challis JRG, Matthews SG, Gibb W, Lye SJ. Endocrine and Paracrine Regulation of Birth at Term and Preterm. Endocr Rev [Internet]. 2000 Oct [cited 2016 Dec 15];21(5):514-50. Available from: http://www.ncbi.nIm.nih. gov/pubmed/11041447
- Torricelli M, NovembriR, Voltolini C, Conti N, Biliotti G, Piccolini E, et al. Biochemical and biophysical predictors of the response to the induction of labor in nulliparous postterm pregnancy. Am J Obstet Gynecol [Internet]. 2011 Jan [cited 2016 Dec 15];204(1):39.e1-39.co. Available from: http:/ /linkinghub. elsevier.com/ retrieve/ pii/S00029378100 10033
- Smith R. Parturition. N Engl J Med [Internet]. 2007 Jan 18 [cited 2016 Dec 15);356(3):271-
- Available from: http://www.ncbi.alm.nih. gov/pubmed/17229954
- Li XQ, Zhu P, Myatt L, Sun K. Roles of glucocorticoids in human parturition: A controversial fact? Placenta [Internet]. 2014 May [cited 2016 Dec 151;35(5):291-6. Available from: http://www.ncbi.nlm.nih.gov/pubmed/ 24680291
- Kamel RM. The onset of human parturition. Arch Gynecol Obstet [Internet]. 2010 Jun 3 [cited 2016 Dec 15];281(6):975-82. Available from: http://link.springer.com/10.1007/ s00404-010-1365-9
- Andersson S, Minjarez D, Yost NP, Word RA. Estrogen and Progesterone Metabolism in the Cervix during Pregnancy and Parturition. J Clin Endocrinol Metab [Internet]. 2008 Jun [cited 2016 Dec 15|;93(6):2366-74. Available from: http://www.ncbi.nlm.nih.gov/pubmed/ 18304378
- Byrns MC. Regulation of progesterone signaling during pregnancy: Implications for the use of progestins for the prevention of preterm birth. J Steroid Biochem Mol Biol [Internet]. 2014 Jan [cited 2016 Dec
- ;139:173-81. Available from: http://www. ncbi.nim.nih.gov/pubmed/2341059%6
- Mesiano S, Welsh TN. Steroid hormone control ofmyometrial contractility and parturition. Semin Cell Dev Biol [Internet]. 2007 Jun [cited 2016 Dec 15);18(3):321-31. Available from: http://www.ncbi.nim.nih.gov/ pubmed/ 17613262
- Mesiano S, Chan E-C, Fitter JT, Kwek K, Yeo G, Smith R. Progesterone Withdrawal and Estrogen Activation in Human Parturition Are Coordinated by Progesterone Receptor A Expression in the Myometrium. J Clin Endocrinol Metab [Internet]. 2002 Jun [cited 2016 Dec 15|;87(6):2924-30. Available from: http://www.ncbi.nim.nih.gov/ pubmed/ 12050275
- Mesiano S, Wang Y, Norwitz ER. Progesterone Receptors in the Human Pregnancy Uterus: Do they Hold the Key to Birth Timing? Reprod Sci [Internet]. 2011 Jan 1 [cited 2016 Dec 15];18(1):6-19. Available from: http:// www.ncbi.nlm.nih.gov/pubmed/20889955
- Mitchell BF, Wong S. Changes in 17 beta,20 alpha-hydroxysteroid dehydrogenase activity supporting an increase in the estrogen/ progesterone ratio of human fetal membranes at parturition. Am J Obstet Gynecol [Internet]. 1993 May [cited 2016 Dec 15];168(5):1377-
- Available from: http://www.ncbi.nlm.nih. gov/pubmed/ 8498415
- Condon JC, Jeyasuria P, Faust JM, Wilson JW, Mendelson CR. A decline in the levels of progesterone receptor coactivators in the pregnant uterus at term may antagonize progesterone receptor function and contribute to the initiation of parturition. Proc Natl Acad Sci U SA [Internet]. 2003;100(16):9518-23. Available from: http://www.pubmedcentral. nih.gov/articlerender.fegi?artid=1709508: tool= pmcentrezarrendertype=abstract
- Thijssen JHH. Progesterone receptors in the human uterus and their possible role in parturition. J Steroid Biochem Mol Biol [Internet]. 2005 Dec [cited 2016 Dec 151;97(5):397-400. Available from: http:// linkinghub.elsevier.com/retrieve/pii/S09 60076005003614
- Romero R, Scoccia B, Mazor M, Wu YK, Benveniste R. Evidence for a local change in the progesterone/estrogen ratio in human parturition at term. Am J Obstet Gynecol [Internet]. 1988 Sep [cited 2016 Dec
- ;159(3):657-60. Available from: http:// www.ncbi.nlm.nih.gov/pubmed/2971319
- Blanks AM, Thornton S. The role of oxytocin in parturition. 2003;110(April):46-51.
- López Bernal A. Mechanisms of labour— biochemical aspects. BJOG [Internet]. 2003 Apr [cited 2016 Dec 16];39-45. Available from: http://www.ncbi.nlm.nih.gov/pubmed/ 12703110
- Petraglia F, Imperatore A, Challis JRG. Neuroendocrine mechanisms in pregnancy and parturition. Endocr Rev [Internet]. 2010 Dec [cited 2016 Dec 17];31(6):783-8106. Available from: http://press.endocrine.org/ doi/10.1210/er.2009-0019
- Weiss G, Goldsmith LT. Relaxin and the cervix. Front Horm Res [Internet]. 2001 [cited 2016 Dec 17]27:105-12. Available from: http:// www.ncbi.nlm.nih.gov/pubmed/11450422
- Goldsmith LT, Weiss G. Relaxin in human pregnancy. Ann N Y AcadSei [Internet]. 2009 Apr [cited 2016 Dec 17];1160(1):130-5. Available from: http://doi.wiley.com/
- 1111/)j.1749-6632.2008.03800.x
- Palejwala S, Stein DE, Weiss G, Monia BP, Tortoriello D, Goldsmith LT. Relaxin positively regulates matrix metalloproteinase expression in human lower uterine segment fibroblasts using a tyrosine kinase signaling pathway. Endocrinology [Internet]. 2001 Aug [cited 2016 Dec 171;142(8):3405-13. Available from: http://press.endocrine.org/doi/
- 1210/endo.142.8.8295
- Sherwood OD. Relaxin”s physiological roles and other diverse actions. Endocr Rev [Internet]. 2004 Apr [cited 2016 Dec 17];25(2):205-34. Available from: http://press.endocrine.org/ doi/10.1210/er.2003-0013
- Challis JR, Lye SJ, Gibb W. Prostaglandins and parturition. Ann N Y Acad Sei [Internet]. 1997 Sep 26 [cited 2016 Dec 171;828:254-67. Available from: http://www.ncbi.nIm.nih. gov/pubmed/9329846
- Phillips RJ, Fortier MA, López Bernal A, Challis J, Sloboda D, Alfaidy N, et al. Prostaglandin pathway gene expression in human placenta, amnion and choriodecidua is differentially affected by preterm and term labour and by uterine inflammation. BMC Pregnancy Childbirth [Internet]. 2014 Dec 22 [cited 2016 Dec 171;14(1):241. Available from: http:// bmcpregnancychildbirth.biomed central.com/ articles/10.1186/1471-2393-14-241
- Challis JRG, Sloboda DM, Alfaidy N, Lye SJ, Gibb W, Patel FA, et al. Prostaglandins and mechanisms of preterm birth. Reproduction [Internet]. 2002 Jul [cited 2016 Dec 17];124(1):
- 17. Available from: http://www.ncbi.alm. nih.gov/pubmed/12090913
- Gao L, Lu C, Xu C, Tao Y, Cong B, Ni X. Differential regulation of prostaglandin production mediated by corticotropin-releasing hormone receptor type 1 and type 2 in cultured human placental trophoblasts. Endocrinology [Internet]. 2008 Jun [cited 2016 Dec 17]; 149(6):2866-70. Available from: http://press. endocrine.org/doi/10.1210/en.2007-1377
- Keelan JA, Blumenstein M, Helliwell RJA, Sato TA, Marvin KW, Mitchell MD. Cytokines, prostaglandins and parturition—a review. Placenta [Internet]. 2003 Apr |cited 2016 Dec 171;24 Suppl A:533-46. Available from: http:/ /www.ncbi.nlm.nih.gov/pubmed/12842412
- Fuentes A, Spaziani EP, O”Brien WF. The expression of cyclooxygenase-2 (COX-2) in amnion and decidua following spontaneous labor. Prostaglandins [Internet]. 1996 Oct [cited 2016 Dec 17|;52(4):261-7. Available from: http://www.ncbi.nim.nih.gov/pubmed/ 8936582
- Guo CM, Kasaraneni N, Sun K, Myatt L. Cross talk between PKC and CREB in the induction of COX-2 by PGF2?? in human amnion fibroblasts. Endocrinology [Internet]. 2012 Oct [cited 2016 Dec 171;153(10):4938-
- Available from: http://press.endocrine. org/doi/10.1210/en.2012-1441
- Petraglia F, Sawchenko PE, Rivier J, Vale W. Evidence for local stimulation of ACTH secretion by corticotropin-releasing factor in human placenta. Nature [Internet]. 1987 Aug 20 [cited 2016 Dec 19];328(6132):717-9. Available from: http://www.nature.com/ doifinder/10.1038/328717a0
- Challis JRG, Bloomfield FH, Bocking AD, Casciani V, Chisaka H, Connor K, et al. Fetal signals and parturition. J Obstet Gynaecol Res [Internet]. 2005 Dec [cited 2016 Dec 191;31(6):492-9. Available from: http://doi. wiley.com/10.1111/j.1447-0756.2005. 00342.x
- Petraglia F, Giardino L, Coukos G, Calza L, Vale W, Genazzani AR. Corticotropin-releasing factor and parturition: plasma and amniotic fluid levels and placental binding sites. Obstet Gynecol [Internet]. 1990 May [cited 2016 Dec 191;75(5):784-9. Available from: http:// www.ncbi.nlm.nih.gov/pubmed/2158027
- Petraglía F, Potter E, Cameron VA, Sutton $, Behan DP, Woods RJ, et al. Corticotropinreleasing factor-binding protein is produced by human placenta and intrauterine tissues. J Clin Endocrinol Metab [Internet]. 1993 Oct [cited 2016 Dec 191;77(4):919-24. Available from: http://press.endocrine.org/ doi/
- 1210/jcem.77.4.8408466
- Lockwood CJ. The initiation of parturition at term. Obstet Gynecol Clin North Am [Internet]. 2004 Dec [cited 2016 Dec 191;31(4):935-47. Available from: http:// linkinghub.elsevier.com/retrieve/pii/S0889 854504000968
- McLean M, Smith R. Corticotrophin-releasing hormone and human parturition. Reproduction [Internet]. 2001 Apr [cited 2016 Dec 191;121(4):493-501. Available from: http:// www.ncbi.nlm.nih.gov/pubmed/11277868
- Smith R, Smith JI, Shen X, Engel PJ, Bowman ME, McGrath SA, et al. Patterns of plasma corticotropin-releasing hormone, progesterone, estradiol, and estriol change and the onset of human labor. J Clin Endocrinol Metab [Internet]. 2009 Jun [cited 2016 Dec 191;94(6):2066-74. Available from: http://press.endocrine.org/ doi/10.1210/jc.2008-2257
- Gao L, Tao Y, Hu T, Liu W, Xu C, Liu J, et al. Regulation of estradiol and progesterone production by CRH-R1 and -R2 is through divergent signaling pathways in cultured human placental trophoblasts. Endocrinology [Internet]. 2012 Oct [cited 2016 Dec 191;153(10):4918-28. Available from: http://press.endocrine.org/ doi/10.1210/en.2012-1453
- Campbell EA, Linton EA, Wolfe CD, Scragos PR, Jones MT, Lowry PJ. Plasma corticotropinreleasing hormone concentrations during pregnancy and parturition. J Clin Endocrinol Metab [Internet]. 1987 May [cited 2016 Dec 191;64(5):1054-9. Available from: http:// press.endocrine.org/doi/10.1210/jcem-64-
- 1054
- Grammatopoulos DK, Hillhouse EW. Role of corticotropin-releasing hormone in onset of labour. Lancet [Internet]. 1999 Oct [cited 2016 Dec 191;354(9189):1546-9. Available from: http://linkinghub.elsevier.com/ retrieve/pii/S0140673699034182
- Simpkin JC, Kermani F, Palmer AM, Campa JS, Tribe RM, Linton EA, et al. Effects of corticotrophin releasing hormone on contractile activity of myometrium from pregnant women. Br J Obstet Gynaecol [Internet]. 1999 May [cited 2016 Dec 191;106(5):439-45. Available from: http:// www.ncbi.nlm.nih.gov/pubmed/10430194
- You X, Liu J, Xu C, Liu W, Zhu X, Li Y, et al. Corticotropin-releasing hormone (CRH) promotes inflammation in human pregnant myometrium: the evidence of CRH initiating parturition? J Clin Endocrinol Metab [Internet]. 2014 Feb [cited 2016 Dec 191;99(2):E199-208. Available from: http://press.endocrine.org/ doi/10.1210/jc.2013-3366
- Petraglia F, Benedetto C, Florio P, D” Ambrogio G, Genazzani AD, Marozio L, et al. Effect of corticotropin-releasing factorbinding protein on prostaglandin release from cultured maternal decidua and on contractile activity of human myometrium in vitro. J Clin Endocrinol Metab [Internet]. 1995 Oct [cited 2016 Dec 191;80(10):3073-6. Available from: http://press.endocrine.org/doi/10.1210/ jeem.80.10.7559899
- Li W, Challis JRG. Corticotropin-Releasing Hormone and Urocortin Induce Secretion of Matrix Metalloproteinase-9 (MMP-9) without Change in Tissue Inhibitors of MMP-1 by Cultured Cells from Human Placenta and Fetal Membranes. J Clin Endocrinol Metab [Internet]. 2005 Dec [cited 2016 Dec 191;90(12):6569-74. Available from: http://press.endocrine.org/ doi/10.1210/jc.2005-1445
- Voltolini C, Petraglia F. Neuroendocrinology of pregnancy and parturition. In 2014 [cited 2016 Dec 19]. p. 17-36. Available from: http:/ /linkinghub.elsevier.com/retrieve/pii/ B9780444596024000022
- Vitoratos N, Papatheodorou DC, Kalantaridou SN, Mastorakos G. “Reproductive” Corticotropin-Releasing Hormone. Ann N Y Acad Sei [Internet]. 2006 Dec 1 [cited 2016 Dec 19];1092(1):310-8. Available from: http:/ / doi.wiley.com/10.1196/annals.1365.029
- Sirianni R, Rehman KS, Carr BR, Parker CR, Rainey WE. Corticotropin-releasing hormone directly stimulates cortisol and the cortisol biosynthetic pathway in human fetal adrenal cells. J Clin Endocrinol Metab [Internet]. 2005 Jan |cited 2016 Dec 191;90(1):279-85. Available from: http://press.endocrine.org/ doi/
- 1210/jc.2004-0865
- Smith R, Mesiano S, Chan E-C, Brown $, Jaffe RB. Corticotropin-Releasing Hormone Directly and Preferentially Stimulates Dehydroepiandrosterone Sulfate Secretion by Human Fetal Adrenal Cortical Cells '. J Clin Endocrinol Metab [Internet]. 1998 Aug [cited 2016 Dec 191;83(8):2916-20. Available from: http://press.endocrine.org/doi/10.1210/ jeem.83.8.5020
- Catbillon L, Uzan M, Challier JC, Merviel P, UzanS. Fetal-placental and decidual-placental units: role of endocrine and paracrine regulations in parturition. Fetal Diagn Ther [Internet]. [cited 2016 Dec 19];15(5):308-18. Available from: http://www.ncbi.nIm.nih. gov/pubmed/10971086
- Wang W, Li J, Ge Y, Li W, Shu Q, Guan H, et al. Cortisol induces aromatase expression in human placental syncytiotrophoblasts through the cAMP/Sp1 pathway. Endocrinology [Internet]. 2012 Apr [cited 2016 Dec 19; 153(4):2012-22.. Available from: http:// press. endocrine.org/doi/10.1210/en.2011-1626
- Yang R, You X, Tang X, Gao L, Ni X. Corticotropin-releasing hormone inhibits progesterone production in cultured human placental trophoblasts. J Mol Endocrinol [Internet]. 2006 Dec 1 [cited 2016 Dec 191;37(3):533-40. Available from: http:// j¡me.endocrinology-journals.org/cgi/ doi/
- 1677/jme.1.02119
- Florio P, Torricelli M, Galleri L, De Falco G, Leucci E, Calonaci G, etal. High fetal urocortin levels at term and preterm labor. J Clin Endocrinol Metab [Internet]. 2005 Sep [cited 2016 Dec 19|;90(9):5361-5. Available from: http://press.endocrine.org/doi/10.1210/ je.2005-0109
- Vaughan J, Donaldson C, Bittencourt J, Perrin MH, Lewis K, Sutton S, et al. Urocortin, a mammalian neuropeptide related to fish urotensin l andto corticotropin-releasing factor. Nature [Internet]. 1995 Nov 16 [cited 2016 Dec 191;378(6554):287-92. Available from: http://www.nature.com/doifinder/
- 1038/378287a0
- Petraglia F, Florio P, Gallo R, Simoncini T, Saviozzi M, Di Blasio AM, et al. Human placenta and fetal membranes express human urocortin mRNA and peptide. J Clin Endocrinol Metab [Internet]. 1996 Oct [cited 2016 Dec 191;81(10):3807-10. Available from: http://press.endocrine.org/doi/10.1210/ jeem.81.10.8855842
- Petraglia F, Florio P, Benedetto C, Marozio L, Di Blasio AM, Ticconi C, et al. Urocortin stimulates placental adrenocorticotropin and prostaglandin release and myometrial contractility in vitro. J Clin Endocrinol Metab [Internet]. 1999 Apr [cited 2016 Dec 191;84(4):1420-3. Available from: http:// press.endocrine.org/doi/10.1210/jcem.84.
- 5585
- Reyes TM, Lewis K, Perrin MH, Kunitake KS, Vaughan J, Arias CA, et al. Urocortin II: A member of the corticotropin-releasing factor (CRF) neuropeptide family that is selectively bound by type 2 CRF receptors. Proc Natl Acad Sci [Internet]. 2001 Feb 27 [cited 2016 Dec 191;98(5):2843-8. Available from: http:/ /www.pnas.org/cgi/doi/10.1073/pnas. 051626398
- Voltolini C, Battersby S, Novembri R, Torricelli M, Severi FM, Petraglia F, et al. Urocortin 2 role in placental and myometrial inflammatory mechanisms at parturition. Endocrinology [Internet]. 2015 Feb [cited 2016 Dec 191;156(2):670-9. Available from: http://press.endocrine.org/ doi/abs/10. 1210/en.2014-1432
- Zakar T, Hertelendy F. Progesterone withdrawal: key to parturition. Am J Obstet Gynecol [Internet]. 2007 Apr [cited 2016 Dec
- ;196(4):289-96. Available from: http:// www.ncbi.nlm.nih.gov/pubmed/17403397
- Soloff MS, Cook DL, Jeng Y-J, Anderson GD. In Situ Analysis of Interleukin-1-Induced Transcription of cox-2 and il-8 in Cultured Human Myometrial Cells. Endocrinology [Internet]. 2004 Mar [cited 2017 May 21:145(3):1248-54. Available from: https:// academic.oup.com/endo/article-lookup/ doi/10.1210/en.2003-1310
- Torricelli M, Giovannelli A, Leucci E, De Falco G, Reis FM, Imperatore A, et al. Labor (Term and Preterm) ls Associated With Changes in the Placental MRNA Expression of Corticotrophin-Releasing Factor. Reprod Sci [Internet]. 2007 Apr 1 [cited 2017 May 21:14(3):241-5. Available from: http:// rsx.sagepub.com/cgi/doi/10.1177/193371 9107300971
- Condon JC, Jeyasuria P, Faust JM, Mendelson CR. Surfactant protein secreted by the maturing mouse fetal lungacts as a hormone that signals the initiation of parturition. Proc Natl Acad Sci US A [Internet]. 2004 Apr 6 [cited 2017 May 21;101(14):4978-83. Available from: http:/ /www.ncbi.nlm.nih.gov/pubmed/15044702
- Islam KN, Mendelson CR. Potential Role of Nuclear Factor ?B and Reactive Oxygen Species in CAMP and Cytokine Regulation of Surfactant Protein-A Gene Expression in Lung Type 11 Cells. Mol Endocrinol [Internet]. 2002 Jun [cited 2017 May 2];16(6):1428-40. Available from: https://academic.oup.com/ mend/article-lookup/doi/10.1210/mend.16.
- 0856
- Mendelson CR, Condon JC. New insights into the molecular endocrinology of parturition. J Steroid Biochem Mol Biol [Internet]. 2005 Feb [cited 2017 May 21;93(2-
- :113-9. Available from: http://www.ncbi. nlm.nih.gov/pubmed/15860253
- Hardy DB, Mendelson CR. Progesterone receptor (PR) antagonism of the inflammatory signals leading to labour. Fetal Matern Med Rev [Internet]. 2006 Nov 9 [cited 2017 May 21;17(4):281. Available from: http:// www.journals.cambridge.org/abstract_ S0965539506001811
Afiliaciones y notas
Ginecólogo Endocrinólogo. Profesor titular y distinguido, sección Endocrinología Ginecológica, Universidad del Valle. ** Residente Ginecología y Obstetricia, Universidad Surcolombiana de Neiva. Rotante clínica Endocrinología Ginecológica, Universidad del Valle.
Cómo citar este artículo
Gómez Tabares G, Aracely Herrera J. Endocrinología del embarazo y trabajo de parto. Rev Col Menop. 2017;23(1):8-25.
Gómez Tabares, G., & Aracely Herrera, J. (2017). Endocrinología del embarazo y trabajo de parto. Revista Colombiana de Menopausia, 23(1), 8–25.
El archivo RIS se importa en Zotero, Mendeley o EndNote. Revisa los nombres de los autores: la cita se arma automáticamente a partir del artículo.