Introducción: la enfermedad cardiovascular (EC) es la principal causa de morbilidad y mortalidad en países desarrollados como en vía de desarrollo. Su etiología es multifactorial; uno de los factores es el consumo de grasas saturadas con efectos sobre las lipoproteínas y en la ateroesclerosis. Fue interés de los autores conocer el efecto de la dieta rica en grasa sobre el perfil lipídico en un modelo experimental como el conejo. Material y métodos: se tomaron 20 conejas New Zealand de 2.500 a 3.000 Kg. de peso, las cuales se dividieron en dos grupos: Grupo I (n=10) 5 control (C), 5 control + dieta rica en grasa 1% (C+D) y el grupo II (n=10) ovariectomizadas, 5 control (O) y 5 con dieta rica en grasa 1% (O + D). Se evaluaron los siguientes parámetros a los tres y seis meses: peso, glicemia, colesterol total (CT), triglicéridos (TG), lipoproteínas HDL, LDL, estradiol (E2). En la evaluación estadística se utilizaron medidas paramétricas y no paramétricas, incluyendo la prueba de Kruskall-Wallis. Resultados: el peso mostró un aumento progresivo en los cuatro grupos, siendo mayor en el grupo de los C + D (54%) (p < 0.001) y las O + D (61%) (p < 0.001). La glicemia produce un descenso progresivo a los tres y seis meses en los controles (-56%) (p < 0.002), siendo mayor en las conejas (O + D) (-64.67%) (p < 0.041). El CT presenta una tendencia a la disminución que es significativa en el grupo (O + D) (p < 0.043). Las HDL muestran una tendencia a la disminución sin diferencias significativas ni a los tres ni seis meses (P < 0.116 y p < 0.609). Las LDL calculadas si bien muestran una disminución, esta no fue significativa (p < 0.754). Los TG muestran un aumento el cual fue significativo (p < 0.011), siendo evidente a los tres meses en los C + D (p < 0.012) y las ovariectomizadas (p < 0.007). El estradiol en los controles presenta un aumento del 13% y en los C + D de un 93% (p < 0.001). Conclusión: este modelo es útil en la evaluación del perfil lipídico con una dieta rica en grasa (1%), evidenciando severos efectos metabólicos en conejas ovariectomizadas.
Introduction: Cardiovascular disease is the main cause of morbility and mortality in developed and underveloped countries around the World. Instead of that ethiology is multifactorial, one of the most important factor is the use of saturated fats and its effect on lipoproteins and atherosclerosis. The aim of the authors was to assess the effect of the fat rich diet on the lipid profile of a rabbit experimental model. Methods: 20 female New Zealand rabbits with 2.500 t0 3 000 kg 0f weight were divided in two groups: Group I (n 10) : 5 controls (C) and 5 rich fat 1% diet (C+D) and group II (n 10) ovariectomized: 5 controls (O) and 5 rich fat 1% diet (O+D). At 3 and 6 months we avaluated the following parameters: weight, GLYCEMIA, total cholesterol TC, Triglycerides TG, HDL lipoproteins, low density lipoproteins LDL and estradiol E2. We use parametric and non parametric measures incluiding the Keuskall-Wallis tests to statistic evaluation. Results: The weight increase progressively in all the 4 groups but higher in the C+D (54%) (p <0.001) y O+D (61%) (p<0.001). Glycemia decrease at 3 and 6 months in controls (-56%) (p<0.002) with a higher decrease in O+D group (-64.67%)(p<0.043). HDL shown a decreased trend with not significant differences at 3 or 6 months. (p0.116 an p<0.609). LDL shown a non statistic significant decrease (p<0.754). TG shown an significant increase (p<0.011) at 3 months in the C+D group(p<0.012) and in ovariectomized (p<0.007). Estradiol had an increase in controls of 13% and 93% in the C+D group (p<0.001). Conclusion: This model is useful in assessing the lipid profile with a high-fat diet (1%) showing severe metabolic effects in ovariectomized rabbits.
I. Introducción
La enfermedad cardiovascular (EC) es la principal entidad que causa mayor morbilidad y mortalidad tanto en países desarrollados como en vía de desarrollo.1 Su etiología es multifactorial desde factores genéticos, nutricionales, ambientales y estilos de vida, atribuyéndole al consumo de grasa saturada un papel importante en el desarrollo de las dislipidemias y en la ateroesclerosis2. Una de las paradojas en este sentido ha sido la observación de que el consumo de grasas no saturadas recomendadas por la Asociación Americana del Corazón (AHA), la Asociación Americana de Diabetes (ADA) y la Asociación Americana de Nutrición (ANA) con frecuencia presenta una disminución en los niveles de las lipoproteínas de alta densidad (HDL).3 Estudios epidemiológicos como estudios en animales soportan la evidencia del papel protector de las HDL.4,5 El tejido graso era inicialmente mirado como un tejido de recubrimiento y protector de la piel. A medida que se fueron descubriendo sus funciones vemos que se trata de una unidad endocrina y paracrina que modula un sinnúmero de procesos metabólicos. El adipocito obtiene su energía a través de la beta-oxidación mitocondrial de los ácidos grasos y su exceso se almacena como triacilglicerol (TAG), permaneciendo como reserva dependiente de la lipoproteína lipasa (LPL) citosólica. Con el fin de almacenar, transformar y utilizar la energía existen dos clases de tejido adiposo; el tejido adiposo blanco (WAT de las siglas inglesas) con células uniloculadas de depósito y el tejido adiposo parto (BAT) que posee células multiloculadas productoras de calor. La función principal del WAT es el almacenamiento de lípidos y su liberación de acuerdo a los requerimientos, a diferencia del BAT que posee un gran número de mitocondrias y un sistema enzimático que inicia una segunda conductancia que no genera ATP sino un desacoplamiento metabólico en estos organelos con producción de calor. La vascularización está aumentada y la relación volumen capilar/ volumen citoplasmático es mayor en el tejido graso que el muscular. El control neuronal es de origen adrenérgico; sin embargo, el BAT posee receptores B3 membrana, los que inducen termogénesis y modificaciones en la eficacia que se utilizan los sustratos siendo un vía alterna para transformar la ganancia de peso por unidad de nutriente ingerido. Su localización es general con una distribución especial en la mujer y el BAT se encuentra en el cuello, región dorsal del tronco, axilar, suprarrenal, riñón y región inguinal.6,7 Su función es bien conocida como aislante térmico, protector de órganos y modulador del contorno corporal especialmente en la mujer, reservorio energético, recientemente demostrado que participa en el control del apetito, en el mantenimiento de peso corporal y como regulador global del metabolismo energético.8 La distribución grasa difiere en el hombre y la mujer y se ha considerado como una de las características sexuales secundarias. La distribución grasa se modifica durante situaciones fisiopatológicas como el embarazo, la menopausia o el transexualismo, sugiriendo un papel potencial de las hormonas esteroideas en sitios específicos de los depósitos grasos.9 Estudios epidemiológicos han encontrado la asociación entre la obesidad y aumento de la mortalidad de origen cardiovascular, cerebrovascular y diabetes.10 Se ha determinado que la obesidad está relacionada con la distribución grasa por género y el índice de masa corporal (IMC = Peso x Talla2), como indicadores de alteraciones metabólicas y cardiovasculares. La obesidad “androide”, distribución grasa en la parte superior del cuerpo, descrita por Vague11, se correlaciona con un incremento de la mortalidad en entidades como diabetes, hiperlipidemia, hipertensión, arteriosclerosis coronaria cerebral y periférica, a diferencia de la distribución ginecoide (parte baja del abdomen) propia de las mujeres, que las mantiene protegidas de estos eventos hasta cinco años después de la menopausia.12 La distribución de esta obesidad se ha correlacionado con un aumento de glucosa e insulina plasmática, disminución de las lipoproteínas de alta densidad (HDL), modificaciones en el IMC, conformando un complejo de síntomas y signos del síndrome metabólico (SM).13 Es por esto que fue interés de los autores conocer los efectos de la dieta rica en grasa sobre el perfil lipídico en un modelo experimental como el conejo.
II. Material y métodos
Tipo de estudio: estudio experimental en conejas New Zealand con peso de 2.500 a 3000 kg con una dieta rica en grasa al 1%. Muestra: se tomaron 20 conejas maduras New Zealand de 3 Kilos de peso en condiciones de temperatura 21°C y ciclo normal de día y noche. Se dividieron en cuatro grupos: Grupo A: conejas control: 1) Dieta normal (C) n = 5; 2) Dieta hiperlipidémica (C + D) n = 5. Grupo B: conejas ovariectomizadas (O): 1) Dieta normal (O) n = 5; 2) Dieta hiperlipidémica (O + D). Dieta: se utilizó una dieta rica en 1% de colesterol, enriquecida con 10% de aceites ricos en ácidos grasos saturados (palma (A)), monoinsaturados (oliva (B)) y poliinsaturados (maíz (C)).29 Laboratorio: durante este período se tomó muestra de sangre de la vena central de la oreja en cantidad de 10 ml, al inicio Tiempo 0.12 (T2) y 24 semanas (T3). Diez conejas que se llevaron a ovariectomía, en las instalaciones de la Clínica Veterinaria de la UDCA. Bajo anestesia general, se llevó a cabo la laparotomía con extracción bilateral de la gónada. Con los cuidados postoperatorios de acuerdo a las guías existentes para estos casos. 1. Se evaluó el peso semanalmente y el promedio de aumento se consignó el día de la toma en el tiempo T0 (octubre, 2007), T2 (febrero, 2008) y T3 (mayo, 2008). 2. Química sanguínea: se determinó glicemia, colesterol total (CT), lipoproteínas de alta densidad (HDL), LDL * calculado y triglicéridos (TG). Estradiol (E2). Técnica: se utilizó el método ELISA30. Valores normales:31
Método Intervalo de referencia
Glicemia Enzimático colorimétrico Colesterol total Enzimático colorimétrico HDL Colorimétrico enzimático homogéneo LDL *calculado Calculado Triglicéridos Enzimático colorimétrico Estradiol Inmunoensayo de electroquimio-luminiscencia en fase sólida 3. Niveles de estradiol: los niveles de estradiol son un buen marcador de la función ovárica y su relación con el tejido graso; está documentada mostrando un aumento mayor y proporcional al aumento de tejido graso. La determinación se hizo por quimioluminiscencia. Los niveles en conejas están entre 14 y 43 picogramos:
Análisis estadístico
Manejo estadístico: se ha calculado que una muestra de cinco conejas podría ser requerida para que la prueba tenga una seguridad del 90% y un intervalo de confianza del 95% (Riesgo alfa 5%). El análisis se hará por el sistema Condiciones T0 basales Variables Conejas Media DE
P < 0.001 Peso 1 (g) Control 2920
192.4 Control + dieta 2940
328.6 Ooforectomizada 3420
414.7 Ooforectomizada + dieta 3160
371.5
0.098 *
2-450 mg/dl 3-800 mg/dl 3-120 mg/dl
4-1000 mg/dl
5-4300 pg/ml
Epi-Info 2.000 sofware estadístico (Center for disease Control and Prevention, Atlanta, GA.USA./ World Health Organization, Geneve, Switzerland). Los datos se presentarán con su desviación estándar (DS), el promedio de las diferencias y los intervalos de confianza en porcentaje. Los resultados se harán en porcentaje. La comparación se hará con la T de student, el test X2 para ambos grupos y la prueba de Kruskall-Wallis.
Se considera una prueba de significancia cuando p < 0.05.17
Instrumento de recolección: los datos se
consignaron en formulario de Excel para su procesamiento.
T3 T6
Media
DE
P < 0.001
Media
DE
P < 0.001 4090
89.44 4500
306.19 4060
602.5 4460
672.12 4100
264.6 4360
281.51 3980
825.8
0.9839
4716
888.84
0.3916 *
0.0001 0.0001
Condiciones TO
HDLI Control 34.6
321 Control + dieta 39
8.49 Ooforectomizada 47.6
9.89 Ooforectomizada dieta 52
7.87
LDLI Control 13.28
13.28 Control + dieta 4.68
6.2 Ooforectomizada 12.56
8.36 Ooforectomizada dieta 37.4
40.46
TGI Control 87.6
21.34 Control + dieta 82.6
23.26 Ooforectomizada 97.2
37.9 Ooforectomizada + dieta 9%6
37.22
T3 T6
24.6
6.35 47
23.05 23.8
6.06 32.4
16.98 36
7.81 37.4
13.85 0.014
35.6
15.91
0.1163
35.25
15.26
0.6097
9.24
4.57 9.36
9.4 324
2.88 14.24
8.61 -3.56
6.34
0.018
8
12.39 0.014
11.88
11.93 13.44
19.8
0.7544
56.8
16.48 90.2
34.69 42.8
6.3
0.012
93.8
31.33 101.8
26.48
0.0007
110
21.14 0.972
76.6
17.97 109.8
19.5
0.5873 * 0.0116
Comité de Bioética: el estudio fue autorizado por el Comité de Bioética, Sección Experimentación animal de la UDCA, de acuerdo a la normatividad internacional existente en el manejo ético de animales en experimentación.
III. Resultados

Evaluación inicial, 3, 6 meses T0 Variables Conejas Media DE
Peso 1 (g) Control 2920
192.4 Control + dieta 2940
328.6 Ooforectomizada 3420
414.7 Ooforectomizada + dieta 3160
371.5 *
Este grupo (grupo A) inicia tanto los controles como los que van a recibir la dieta con promedio de peso de 2.930 Kg. En su control a los tres meses las conejas control (C) presentan una elevación del peso 1.170 kg (40,46%) y en la conejas control con dieta (C + D) de 1.135 kg (37.65%). A los tres meses el grupo C presenta un aumento de 1.580 kg (9.98%) en los C + D de 1.825 kg (9.86). No hay diferencias significativas intragrupo (p > 0.911). El aumento total en los controles fue de 54.42% y en los C + D de 51.14% (p < 0.001).
Glicemia: controles/dieta
T3 T6 PS*
Media
DE
PS*
Media
DE
PS*
4090
89.44 4500 306.19 4060
602.5 4460 672.12 4100
264.6 4360 281.51
0.098
3980
825.8 0.9839 4716 888.84 0.3916 *
0.0001 0.0001
El grupo de las ovariectomizadas inicia con un peso promedio de 3.290 kg, presentando un aumento de 680 Kg. en el grupo control (21.38%) y 811 kg C+D (25.40%) a los tres meses. Al final de los seis meses se aprecia una aumento de peso total 940 Kg. (6.42%) en los controles y de 1.300 Kg. (6.10%) en los C + D sin diferencias significativas intragrupo (P < 0.650). El aumento total a los seis meses fue de 29.14% en los controles y de 61.28% en los C + D (p < 0.001).
Evaluación inicial, 3, 6 meses T0 Variables Conejas Media DE
Glicemia 1 Control 132.4
53.66 Control + dieta 130.6
48.11 Ooforectomizada 127.8
56.76 Ooforectomizada + dieta 124.4
27.79 *
0.0431
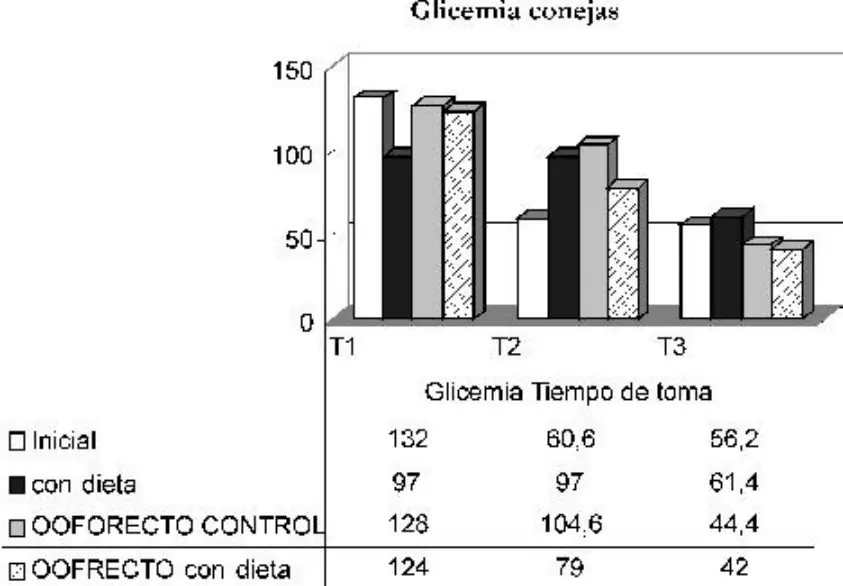
La glicemia en los conejos controles presenta unos datos muy consistentes con una disminución en el primer trimestre (8.81%) y un poco más severa en los C+D de -17.20. Al finalizar el estudio la disminución en los controles fue de -56.58% y C+D de 56.80 sin diferencias significativas entre grupos (p < 413), pero su descenso inicial y final del estudio si fue significativo (p < 0.002).
Grupo B. Glicemia ovariectomizadas/ dieta
En el grupo de las ovariectomizadas se presentan las mismas características de disminución de la glucosa a los tres meses en los C (18.75%) y mucho más severa en los C+D
T3 T6 PS*
Media
DE
PS*
Media
DE
PS*
60.6
48.72 56.2
29.78 97
16.61 61.4
56.73 104.6
19.78 44.4
22.2
0.878
79
35.93 0.2275 41.5
11.39 0.8338
(-31.69%). Al final de los seis meses esta disminución es mucho más severa en los C (- 58.79) y en los C + D (-64.67) con diferencias significativas (p < 0.001).
Grupo A. Colesterol total controles/dieta
El colesterol total presenta una curva de descenso de su niveles a los tres meses en los C de -27.76% y en los C+D de -36.86%. Al final de los seis meses presenta una elevación en ambos grupos por encima de los niveles iniciales sin ser significativo este aumento intragrupo (p < 0.296). Al comparar las modificaciones de CT inicial y al final su aumento, muestra diferencias significativas (p < 008).
Grupo B. Colesterol total ovariectomizadas/dieta
En el grupo de la ovariectomizadas se evidencia una disminución del CT a los tres meses en el grupo C (-30.10%) y en el grupo C+D (62.8%). Al final de los tres meses hay una moderado aumento de los niveles en ambos grupos sin llegar a los valores iniciales con una Evaluación inicial, 3, 6 meses T0 Variables Conejas Media
DE
HDL1
Control 34.6
3.21 Control +dieta 39 8.49 Ooforectomizada 47.6
9.89 Ooforectomizada +dieta 52 7.87 0.014 tendencia a ser significativa (p < 0.098). Al final de los seis meses esta disminución sí es significativa (p < 0.009).
Grupo A. HDL controles/dieta
Según los datos obtenidos en este grupo control, las HDL a los tres meses muestran una disminución en los C (-28%) y en los C + D
T3 T6 PS* Media DE
PS* Media DE
PS*
24.6
6.35 47 23.05 23.8
6.06 32.4 16.98 36 7.81 37.4 13.85
35.6 15.91 0.1163 35.25 15.26 0.6097 (-34.63%). A los seis meses hay una recuperación por encima de los niveles normales en los C (109.30%) y en los C + D (32.4%) sin ser significativos estos valores intragrupo (p < 0.447). Al comparar los valores iniciales y finales este aumento es moderadamente significativo (p < 0.030) por encima de los valores iniciales.
Grupo B. HDL ovariectomizadas/dieta
Las HDL en las conejas ovariectomizadas presentan un comportamiento totalmente diferente a los controles con una disminución progresiva de los controles a los tres meses (-19.97%) y en los C + D (-28.02%) y a los seis meses en los C (+7.15%) y en los C + D (-4.86%) sin diferencias significativas intragrupo (p < 0.809) pero su disminución es moderadamente Evaluación inicial, 3, 6 meses T0 Variables Conejas Media DE
LDL1
Control 13.28 13.28 Control + dieta 4.68
6.2 Ooforectomizada 12.56
8.36 Ooforectomizada + dieta 37.4 40.46
significativa entre los valores iniciales y finales (p < 0.021).
Grupo A. LDL controles/dieta
Las LDL en las conejas control a los tres meses muestran una disminución en los controles (-36.78%) y en los C + D (-40.10%). A los seis meses en los controles persiste la disminución moderada en los controles (35.48%) y una elevación en los C+D (350%). Sin diferencias significativas intragrupo (p < 0.130). Al final hay una disminución en los grupos control (-41.36%) y un aumento en los C + D de 106.93%. Al encontrarse valores negativos desde el punto estadístico no hay significancia (p < 0.152).
T3 T6 PS*
Media
DE
PS*
Media
DE
PS*
9.24
4.57 9.36
9.4 3.24
2.88 14.24
8.61 -3.56
6.34
0.018
8 12.39
0.014
11.88 11.93 13.44
19.8
0.7544
Grupo B LDL Ovariectomizadas /Dieta
En el grupo B las conejas ovariectomizadas controles presentan una disminución del -9% y en las O+D del 26.43% a los tres meses con una recuperación a los 6 meses(O) de 131.6% frente a una disminución (O+D) -18.04% presentando una diferencia significativa (p<0.026).
Evaluación inicial, 3, 6 meses T0 Variables Conejas Media DE
TG1
Control 87.6 21.34 Control + dieta 82.6 23.26 Ooforectomizada 97.2
37.9 Ooforectomizada + dieta 96 37.22 0.972 diferencias intragrupo (p < 0.381). Al comparar los valores iniciales y finales este aumento es significativo (p < 0.009).
Grupo B. Triglicéridos ovariectomizadas/ dieta
En las conejas ovariectomizadas los controles muestran un aumento progresivo a los tres meses 18.43% y a los seis meses 13.21%. Las ovariectomizadas con dieta presentan una dis-
Grupo A. Triglicéridos controles/dieta
El comportamiento de los triglicéridos en el grupo control disminuye en el primer trimestre 56.8% con aumento a los niveles iniciales en un 90.2%. El grupo con dieta presenta un descenso a los tres meses (46.31%) con una elevación por encima de los valores iniciales (122.9%) sin T3 T6 PS*
Media
DE
PS*
Media
DE
PS*
56.8 16.48 90.2 34.69 42.8
6.3
0.012
93.8 31.33 101.8 26.48 0.0007 110 21.14
76.6 17.97 109.8
19.5 0.5873 * 0.0116
minución a los tres meses (-9.50%) con un aumento a los seis meses de 29.15%, sin diferencias significativas intragrupo (p < 0.361). Al comparar los niveles iniciales y finales no hay diferencias significativas (p < 0.299).
Niveles de estradiol
El comportamiento del estradiol nos muestra en el grupo A de los controles y C + D que los niveles disminuyen -9.43% a los tres meses con un aumento al final de los seis meses de 25.11%. En contraste las conejas con dieta rica en grasa presentan un aumento a los tres meses de 38% y a los seis meses 39.86%. No hay
Grupo A
diferencias significativas intragrupo (p < 0.912), pero los niveles de E2 aumentaron significativamente en las conejas con dieta rica en grasa (p < 0.010).
Conejas control (C) Conejas T 0
C1 21.35 C2 14.12 C3 16.38 C4 C5 Promedio 17.28 %
T1 T3
12.68 21.05 16.65 16.77 17.89 33.94 13.89 15.84 12.28 15.65 19.58 -9.43 25.11
Conejas control más dieta rica en grasa (1%) (C + D)
C6 C7 12.12 C8 11.31 C9 1033 C10 14.39 Promedio 12.03 % P
14.54 16.85 15.34 26.75 22.17 22.60
24.61 27.30 16.66 23.30 38.49 39.86 0.912 0.010
IV. Discusión
La obesidad es una entidad que se encuentra en aumento en los países desarrollados y actualmente también aparece en los países en vía de desarrollo. La mujer está protegida de los efectos metabólicos hasta que llega a la edad de la menopausia. Posteriormente alcanza al hombre en los efectos coronarios sobre los 60 años, acusa un aumento de peso, de la relación cintura cadera y por lo tanto del perímetro abdominal por modificaciones en el tejido graso y en un 25% a 30% el síndrome metabólico (hipertensión, resistencia a la insulina, dislipidemia y diabetes).18 Se postula que algunas sustancias antioxidantes como la vitamina C, los hipolipemiantes como la atorvastatina, los estrógenos, preservan los daños a nivel endotelial, cardiovascular y en la placa ateromatosa. En nuestro medio son escasos los estudios sobre el tema y en la literatura se describe el efecto que tendría la dieta hiperlipemiante sobre el tejido adiposo (grasa saturada e insaturada) sobre los lípidos16-19 (colesterol total, HDL, LDL, triglicéridos) y algunos marcadores de su función como PCR, leptina, adiponectina y F de necrosis tumoral.20 El tamaño de los adipocitos depende del balance lipogénesis-lipólisis y donde las hormonas esteroideas juegan un papel en este equilibrio. Los glucocorticoides producen una redistribución de la grasa por incremento selectivo en la actividad de la lipoproteinlipasa (mediada por insulina) y una disminución de la respuesta lipolítica a los estímulos. Su efecto es mayor por un número mayor de receptores a nivel de la grasa intrabdominal que en el tejido subcutáneo. Los progestágenos tienen un efecto parecido a los glucocorticoides y se sabe que compiten con este receptor. Los estrógenos con acción definida en la región glútea femoral se encuentran adipocitos de mayor tamaño en mujeres adolescentes y cambios notorios después de la menopausia. La testosterona21 estimula la lipólisis y una disminución de esta como de la lipoproteinlipasa explica el aumento de grasa intra-abdominal al aumentar la edad en los hombres. En mujeres obesas la tasa de producción de estrona (E1) y estradiol (E2) está elevada. En la menopausia la mayor parte de la E1 procede de la aromatización periférica de la androstendiona (A4) y como el tejido adiposo puede aromatizar A4 a testosterona (15-beta- hidroxiesteroide - oxidoreductasa) y E1 a E2. Por otra parte el efecto de la 5-@-reductasa transformaría la A4 y T en dihidrotestosterona. Recordemos cómo el ovario en la posmenopausia eleva los niveles de andrógenos22 a la actividad de las aromatasas mediadas por un complejo enzimático perteneciente a la familia de los citocromos P-450, es estimulada por el AMPc y sus análogos o aquellas hormonas que lo activan como la ACTH, glucocorticoides, catecolaminas. Las inhiben los diferentes factores de crecimiento como el de los fibroblastos, crecimiento epidérmico o plaquetario. En mujeres obesas también se ha encontrado una elevación en la aromatización de A4a E1 como de T a E2.23 Por otra parte, la forma libre de estos esteroides está elevada ante una disminución de la globulina transportadora de hormonas sexuales (SHBG).
Normalmente el cuerpo humano debe tomar su energía de tres fuentes principales como son las proteínas, hidratos de carbono y las grasas, los cuales deben generar aproximadamente un 55% de calorías diarias dependiente de los H de carbono, 10%-15% de las proteínas y menos del 30% de las grasas. Inicialmente el hombre era herbívoro y tomaba la energía de los frutos secos y plantas. Con la caza de animales se inicia un acomodamiento de su vía intestinal para dar paso a las proteínas y las grasas. La vida moderna exagera este tipo de alimentos con aumento de los hidratos de carbono y grasas, y con el sedentarismo se inicia la carrera hacia la obesidad y las enfermedades cardiovasculares.24 A diferencia, los animales herbívoros, que han mantenido su dieta en el tiempo, su metabolismo no ha sufrido cambio y como modelo se ha podido demostrar que cuando se les administra grasa en la dieta se alteran sus procesos metabólicos con aumento de arteriosclerosis a nivel de sus vasos. Es bien conocido que una dieta rica en grasas e hidratos de carbono promueve un aumento de peso tanto en humanos24 como en animales de experimentación.25 Se plantea que la administración de una dieta rica en colesterol promueve un aumento del peso de los animales a expensas del tejido graso y este puede ser mayor en la medida en que se prolongue en el tiempo.26 El presente estudio muestra cómo una dieta normal, balanceada, frente a una dieta rica en grasa (1%) produce un aumento progresivo de peso mayor a los tres y seis meses. Este efecto ha sido descrito en humanos, en quienes se presenta un aumento de peso mayor después de la menopausia o de una ovariectomía.27 Las conejas controles muestran un aumento discretamente mayor que los C + D sin ser significativo intragrupo. El aumento al final de los tres meses en el total de peso ganado sí muestra una diferencia significativa. Las conejas ovariectomizadas ganan menos peso al compararlas con el grupo A a los tres meses pero el aumento de peso es mayor 61% en las conejas C + D a los seis meses del estudio. Estudios de este mismo corte se han realizado a las cuatro semanas y no tenemos reporte de un seguimiento a los seis meses.15-28 La gluconeogénesis es el mecanismo por medio del cual otras sustancias diferentes de los carbohidratos se pueden convertir a glucosa o a glicógeno. Los sustratos principales son los aminoácidos glucogénicos, lactato, glicerol y en los rumiantes el propionato. Su metabolismo se lleva a cabo principalmente en el hígado y el riñón. En los conejos este mecanismo es muy sensible y se han podido estudiar sus efectos nivel embrionario y como un modelo para la diabetes experimental29. Se sabe que la lipoprotein-lipasa se encuentra asociada a dislipidemia, arteriosclerosis y resistencia a la insulina. Su aumento o disminución tendría efecto sobre la glucosa y la resistencia a la insulina30.
En el presente estudio la glicemia en general presenta una disminución progresiva de sus niveles en los cuatro grupos. En el grupo control muestra una disminución progresiva de la glucosa mayor en los controles que en el C + D y al final se igualan en cifras de disminución (-64%) con una p > 0.001. En el grupo B de las ovariectomizadas la disminución de la glucosa es mucho más severa tanto en los controles como en los C + D al compararlas con el grupo A (controles) y al final la disminución es de -64.67% sin signos de recuperación. Esta disminución progresiva explica en parte la muerte que tuvimos en la coneja número 9 que fallece después de los tres meses.
Metabólicamente la dieta rica en grasa está regulada por la insulina, el glucagon y la somatostatina. Esta elevación de los niveles de insulina nos llevará a una disminución de los niveles de glucosa y por este mecanismo se podría explicar la disminución de glucosa en los grupos de conejas con dieta rica en grasa y en las ovariectomizadas. Sin embargo, para este grupo se esperaría que la glicemia no cambie y no tenemos una explicación para este hallazgo. En un estudio cubano31 induce diabetes en conejos como modelo experimental, encontrando que la disminución de la glucosa con alloxan es progresiva con una mortalidad del 4% en la primera semana que explica parte de nuestros hallazgos. Existe una hipótesis interesante donde Kitajima y colaboradores.30 postulan que el incremento de la lipoproteinlipasa (LPL) mejora la resistencia a la insulina y reduce la acumulación de tejido adiposo en conejos transgénicos, indicando que su elevación podría tener efectos benéficos en la resistencia a la insulina y obesidad. En nuestro caso es posible que la LPL se encuentre comprometida en la resistencia de la insulina por el exceso de grasa y explique la disminución progresiva en las conejas ovariectomizadas. Las grasas absorbidas durante la alimentación y los lípidos sintetizados por el hígado y el tejido adiposo deben ser transportados a los diferentes tejidos para su utilización y almacenamiento. En la biosíntesis de los lípidos intervienen cuatro vías de las cuales se forman los ácidos grasos (AG), triglicéridos (TG), colesterol (CT) y sus ésteres y esfingolípidos. El transporte de los lípidos se hace por vía sanguínea unidos a proteínas llamadas lipoproteínas. Esas lipoproteínas están compuestas de TG y ésteres de colesterol rodeadas de fosfolípidos. Esas lipoproteínas se clasifican de acuerdo a su tamaño y densidad en el siguiente orden: quilomicrones (800-5000 ángstrom), lipoproteínas de muy baja densidad (VLDL) 300-800 A, lipoproteínas de densidad intermedia (IDL) 250-350 A, lipoproteínas de baja densidad (LDL) 180-280 A, lipoproteínas de alta densidad (HDL) que incluyen las HDL2 (90 a 120 A) y HDL3 (50 a 90 A).32
En el presente estudio los niveles de colesterol grupo A las conejos control vs C + D presentan una disminución a los tres meses (-28% y -37%) con un aumento de sus niveles por encima de los iniciales (71% y 80%) a los seis meses con diferencias significativas P < 0.008. En el Grupo B de las ovariectomizadas el colesterol total disminuye a los tres meses en los controles (-30%) y esta disminución es mayor en la ovariectomizadas con dieta (42%). A los seis meses se evidencia una tendencia a la recuperación sin llegar a los valores iniciales. Algunos estudios reportan aumento de niveles de colesterol después de la ovariectomía explicable en parte por el aumento de tejido graso y de hecho la ingesta de grasa debe aumentar los niveles de los lípidos.28, 33. Llama la atención de los niveles en los dos grupos A y B con una recuperación por encima de sus niveles iniciales en el grupo A, pero con una respuesta menor en el grupo de las ovariectomizadas que no evidencia un daño metabólico de respuestas que puede estar en el hígado, tejido muscular o adiposo. Las HDL pueden ser secretadas en el hígado. Los componentes de las HDL son derivados de la monocapa superficial de las lipoproteínas ricas en triglicéridos y de las membranas celulares de los tejidos periféricos. Las partículas de HDL más pequeñas contienen apolipoproteínas, colesterol libre y fosfolípidos. Una de las acciones importantes es que las HDL se comportan como unas moléculas protectoras contra la arteriosclerosis14. El colesterol de los tejidos periféricos es liberado mediante transferencia al plasma donde se une con las lipoproteínas plasmáticas. La transferencia de colesterol libre desde las células a las HDL sería la etapa que inicia la disminución del colesterol de la superficie endotelial. El colesterol no se puede metabolizar en los tejidos periféricos sino que debe ser transportado al hígado para su eliminación. Una de sus principales acciones sería la de proteger en forma directa contra la ateroesclerosis, sugiriéndose que inhibe la proliferación de las células musculares lisas e impidiendo que los macrófagos capten las LDL oxidadas. Por otra parte, las altas concentraciones de HDL2 pueden revelar una metabolización eficiente de las lipoproteínas ricas en triglicéridos que no permiten que las CETP (proteínas transferidoras de ésteres de colesterol) trasfieran los ésteres de colesterol a las lipoproteínas aterogénicas ni los triglicéridos a las HDL para su hidrólisis.34 El grupo A de los controles frente a los C + D presentan una disminución en el primer trimestre (-28% vs. 35%), mayor en las C + D, con una recuperación mayor a los seis meses en los controles (109%) frente a los C + D (32.4%) con una p < 0.030, por encima de valores iniciales en un comportamiento similar al colesterol total. El grupo B de las conejas ovariectomizadas presenta una disminución progresiva a los tres meses más severa en la O + D (-20% vs -28%) y a los seis meses los controles permanecen casi al mismo nivel de los tres meses y los O + D presentan un balance negativo (-5%) con una p < 0.021 que está de acuerdo con los hallazgos clínicos donde el aumento de peso, la dieta rica en grasas así como la disminución de los estrógenos producen una disminución de las HDL.
Las partículas IDL formadas de las VLDL pueden ser captadas por el hígado o convertidas en LDL por acción de la lipasa hepática. Una vez convertidas las IDL en HDL la Apo E (se encuentra adherida) es transferida a otras lipoproteínas y la APO B-100 queda como única proteína importante de las HDL. Las LDL entregan el colesterol a las células de tejido periférico para que sinteticen sus membranas celulares y hormonas esteroideas. Normalmente las LDL transportan alrededor del 70% del colesterol plasmático. Los receptores para la LDL se encuentran en casi todas las células del organismo incluidos los hepatocitos que utilizan gran parte del colesterol LDL para formar ácidos biliares. Estos receptores son muy abundantes y activos al inicio de la vida pero disminuyen con los años. Cuando no hay suficiente cantidad de colesterol existe un aumento de receptores para la LDL en la membrana celular. Este mecanismo explica que un daño en el receptor como sucede en la hipercolesterolemia familiar homocigota así como una dieta rica en grasas saturadas y colesterol puede provocar la supresión crónica de la actividad de los receptores LDL.
Normalmente el exceso de las LDL que no son eliminadas por los receptores LDL, lo hacen por vía del sistema retículo-endotelial por células depuradoras o “células barredoras”. Existe otro mecanismo en estos receptores que se llaman “receptores de acetil LDL” que reconocen solo las partículas LDL químicamente modificadas por acetilación u oxidación. Este acúmulo de células LDL oxidadas determina la aparición de células espumosas a partir de los macrófagos cargados de lípidos. Estas células ejercen un efecto quimiotáctico sobre los monocitos circulantes, son citotóxicas e inician una respuesta inflamatoria. Este es el inicio de la placa arteriosclerótica que clínicamente llega a la trombosis y el infarto del miocardio.35Las partículas IDL formadas de las VLDL pueden ser captadas por el hígado o convertidas en LDL por acción de la lipasa hepática. En el grupo A control frente a dieta hay una disminución a los tres meses en los C de -37% y C + D - 40% con una recuperación de seis meses de 35.48% frente a 350% en los C + D sin diferencias significativas intragrupo ni al final de los seis meses. Las LDL en el grupo de las ovariectomizadas presentan una disminución similar a los controles a los tres meses y una recuperación a los seis meses por encima de los niveles iniciales con o sin diferencias significativas. Existe una estrecha relación entre las lipoproteínas ricas en triglicéridos y las HDL sobre los efectos a nivel cardiovascular. Se ha asociado el aumento de niveles plasmáticos como un factor predictivo en enfermedad cardiaca en estudios prospectivos univariados pero esta asociación se pierde cuando se hacen análisis de variables múltiples, en particular cuando se tiene en cuenta los valores de HDL. Esta dificultad deriva de la heterogeneidad de las lipoproteínas ricas en triglicéridos. Uno de los efectos secundarios está relacionado con los mecanismos de la coagulación y la fibrinólisis.19 En el grupo A los TG presentan una disminución a los tres meses mayor en el grupo C + D, con una recuperación por encima de los niveles iniciales Al final de los seis meses. En el grupo B existe un aumento progresivo de los niveles de TG en las conejas 0 control del 31%, mientras que en la O + D existe una disminución en sus niveles a los tres meses con aumento similar a los controles al final de los seis meses sin diferencias significativas intragrupo y con dieta.
El estradiol es una hormona producida por el ovario y en menor cantidad procede de la suprarrenal. Es conocido que los esteroides sexuales modulan el tejido adiposo por diferentes mecanismos: uno por vía de estimulación de moléculas inflamatorias como el factor de necrosis tumoral alfa (TNF), interleuquinas (IL1- IL-6, IL8, IL10), homeostasis energética (adiponectina, leptina, resitina), relacionadas con los lípidos (lipoprotein-lipasa, apo E, glicerol)30. Por otro lado, las hormonas esteroidas sobre receptores alfa o beta estimulan la distribución grasa del cuerpo con diferencias de género. Para este efecto existen diferentes enzimas como la 17 α hidroxilasa y las aromatasas que aumentan la síntesis de estrógenos en el tejido adiposo. Al disminuir los estrógenos se aprecia a nivel experimental y mujeres posmenopáusicas un aumento del tejido graso y, por lo tanto, un aumento moderado de peso.31 El estradiol como marcador endocrino aumenta en ambos grupos y casi en forma proporcional al peso, diferenciándose que en las conejas con dieta rica en grasa sus niveles son mayores con diferencias significativas, que están de acuerdo con otros estudios donde demuestran el efecto protector de los estrógenos sobre la placa de ateroma.36,37 De acuerdo con estos resultados y después de una revisión parcial de la literatura, podemos concluir que estamos ante un buen modelo para el estudio de la arteriosclerosis. Que la dieta rica en grasas al 1% ejerce severas repercusiones en el metabolismo de la glucosa, de los lípidos y de la placa ateromatosa. Que la ovariectomía produce efectos más severos a nivel vascular y hepático y que este será el comienzo de futuras investigaciones sobre el tema.
Agradecimientos
A las Directivas de la Universidad y a la Vicerrectoría de Investigaciones por el apoyo recibido para la realización de este proyecto. A todos nuestros colaboradores que desinteresadamente nos ayudaron en la consecución de los conejos, su control pre y postoperatorio. A la Clínica Veterinaria que nos prestó sus instalaciones para la realización de parte quirúrgica. Al personal de la Clínica, Bioterio, Médicos veterinarios, Cirujanos, Anestesiólogo, Ecografista, Patólogos y Estadística de la UDCA que hicieron posible concluir exitosamente esta investigación.
Referencias
- Tavazzi I. Clinical epidemiology of acute myocardial infarction. Am Heart J 1999; 138:548-554.
- Key A. Coronary heart disease in seven countries. Nutrition 1997; 13:250-252.
- Mensink RP, Zock PL, Kester AD, Katam MB. Effects of dietary fatty acids and carbohydrates on the ratio of serum total to HDL cholesterol and on serum lipids and apolipoproteins a metaanalysis of 60 controlled trials. Am J Clin Nutr 2003; 77:1146-1155.
- Turner RC, Millns H, Neil HA, Stratton IM, Manley SE, et al. Risk factors for coronary artery disease in non-insulin dependent diabetes mellitus: United Kingdom Prospective Diabetes Study (UKPDS-23). Br Med J 1998; 316:823-828.
- Sapdy DK, Kearney DM, Hobbs HH. Polyunsaturated fatty acids up-regulate hepatic scavenger receptor BI(SR-BI) expression and HDL cholesteryl ester uptake in the hamster. J Lipid Res 1999; 40:1384-1394.
- Viveros AV, Laviada HM, Bastarrachea RS. Influencia endocrina y paracrina sobre la adipogénesis. Rev Endocrinol Nutri 2002; 10:151-164.
- Clement K, et al. Genetic variation in B3 adrenergic receptor and increased capacity to gain weight in patients with morbid obesity. NEJM 1995; 1241:333-352.
- Leroy P, Dessolin S, Villageois P, et al. Expression of ob gen in adipose cells. J Biol Chem 1996; 271:2365-2368.
- Canoy D. Distribution of body fat and risk of coronary disease in men and women. Curr Opin Cardiol 2008; 23:591-598.
- Larsson B. Obesity, fat distribution and cardiovascular disease. Int J Obesity 1991; 15:53-57.
- Vague J. La differenciacion sexualle facteur determinant des fromes de obesite. Press Medi 1947; 55:339-340.
- Recasens M, Picart JM, Fernandez Real. Obesidad e Inflamación. Rev Med Uni Navarra 2004; 48:49-54.
- Wajchenberg BL. Subcutaneus and visceral adipose tissue: their relation to the metabolic síndrome. Endocrine Reviews 2000; 21:697-738.
- Stein Y, Stein O, Dabach Y, et al. Antiatherogenecity of high density lipoprotein. Israel J Med Sci 1996; 36503-36509.
- Herrera A, Lebredo A, Céspedes LM, et al. Perfil lipídico en el suero de conejos tratados con etanol y dieta hipercolesterolémica. Rev Cubana Invest Biomed 2003; 22:123-129.
- Clinical application of C-Reactive protein for cardiovascular disease detection and prevention. Circulation 2003; 107:363-369.
- Kirkwood B. Essentials of medical statistics. Blackwell scientific publications. Cambridge Center, Massachusetts USA,1999.
- Roger M, Blumel JE, Onatra W, et al. Prevalencia del síndrome metabólico en mujeres postmenopáusicas latinoamericanas. Climateric 2007; 10:164-170.
- Zhao SP, Zhang DQ. Atorvastatin enhances cellular uptake of oxidized LDL in adipocytes from hypercholesterolemic rabbits. Clin Chim Acta 2004; 339:189-194.
- Zhao SP, Wu ZH, Wu J, Hong S, Deng P. Effect of atorvastatin on tumor necrosis factor alpha serum concentration and mRNA expression of adipose in hypercholesterolemic rabbits. J Cardiovascular Pharmacol 2005; 46:185-189.
- Lea-Currie YR, Wen P, McIntosh MK. Dehydroepiandrosterone reduces proliferation and differentiation of 3T3L1 preadipocytes. Biochem Biophys Res Commun 1998; 248:497-504.
- Longcope C, Baker R, Johnston Jr CC. Androgen and estrogen metabolism: relationship to obesity. Metabolism 1986; 35:235-237.
- Simpson ER, Mendelson CR. Effect of aging and obesity on aromatase activity of human adipose cells. Am J Clin Nutr 1987; 45:290-291.
- Yancy WS, Westman EC, Fresch AP. Diets and clinical coronary events: the truth is out there. Circulation 2003;107:10-16.
- Harrison DG, Ohara Y. Physiologic consequences of increased vascular oxidant stress in hypercholesterolemia and atherosclersosis implication for impaired vasomotion. Am J Cardiol 1995; 75:75B-81B.
- Alfonso MA, Almeida GC, Quintela AM, Carbalo SR. Evaluación de um posible modelo experimental em conejos hipercolesterolémicos. Rev Cubana Angiol y Cir Vasc.
- Rebuffe-Scrive M, Enk L, Crona N. Fat cell metabolism in different regions in women, effects of menstrual cycle, pregnancy and lactation. J Clin Invest 1985; 75:1973-1976.
- Blumel JE, Castelo-Branco C, Sanjuan A, Gonzalez P, Moyano C, Iturriaga TM, Gonzalez R, Romero S, Cano A. A simplified method to quantitate atherosclerosis in the rabbit aorta. Maturitas. 2001; 39:265-271.
- Navarrete Santos A, Tonack S, Kirstein M, Kietz S, Fischer B. Two insulin-responsive glucose transporter isoforms and the insulin receptor are developmentally expressed in rabbit preimplantation embryos. Reproduction. 2004 Nov; 128(5):503-516.
- Kitajima S, Morinmoto M, Liu T, et al. Overexpression of lipoprotein lipasa Improve insulin resistance induced by a highfat diet in transgenic rabbits. Diabetología 2004; 47:1202-1209.
- Fleitas AS, Carvallo RS, Almeida G, et al. Modelo experimental de diabetes en conejos. Rev Cubana Angiol y Cir Vasc 2000; 1:10-14.
- Gotto AM, Pownal H. Los trastornos lipídicos en la práctica clínica. Waverly Hispánica S.A. Buenos Aires 1995:1-13.
- Mored DO, Treatment of cholesterol fed rabbits with dictory vitamins E and C inhibits lipoprotein oxidation but no development of atherosclerosis. J Nutr 1994; 11:2123-2130.
- Zhao SP, Wu ZH, Hong SC, et al. Effect of atorvastatin on SR-BI expression and HDL induced cholesterol effux in adipocytes of hypercholesterolemic rabbits. Clin Chim Acta 2006; 365:119-124.
- Russell JC, Proctor SD. Small animal models of cardiovascular disease: tools for the study of the roles of metabolic syndrome, dyslipidemia, and atherosclerosis Cardiovasc Pathol. 2006 Nov-Dec; 15(6):318-330.
- Zhang C, Wu Y, Duan J. Effects of estrogen on serum lipids, plasma endothelin-1, at ovariectomized rabbits. Zhonghua Fu Chan Ke Za Zhi 2000; 35:413-416.
- Haines CJ, James AE, Panesar NS, et al. The effect of percutaneous oestradiol on atheroma formation in ovariectomized cholesterol-fed rabbits. Atherosclerosis 1999; 143:369-375.
Afiliaciones y notas
Recibido para publicación junio 16 de 2009.
Revisado y aceptado agosto 18 de 2009 INSTITUCIÓN: Universidad de Ciencias Aplicadas y Ambientales (UDCA), Bogotá. 1 MD, MSc, Ginecólogo, Endocrinólogo U.N. Profesor Titular, Docente-Investigador, UDCA. wonatra@gmail.com, Celular: 310-2626771, Teléfonos: 6108777-2323656-2876901 2 MVZ, PhD, Decano de Zootecnia UDCA. 3 QF. Docente Laboratorio Bioquímica UDCA. 4 MV. Cirujano, Profesor UDCA. 5 MV. Anestesiólogo Profesor UDCA. 6 MV. Ecografista. Profesora UDCA. 7 Bacterióloga. Gerente Laboratorio de Investigaciones Hormonales. 8 MV. Patóloga, Profesora UDCA. 9 MV. Patóloga, Fundación Santa Fe. 10 MV. Coordinador Bioterio. Profesor UDCA. 11 MD, MSc. Ginecólogo, Endocrinólogo, Epidemiólogo, Profesor Titular, Universidad Nacional de Colombia. 12 Estadística UDCA.
Glicemia1 Control 132.4 53.66 Control + dieta 130.6 48.11 Ooforectomizada 127.8 56.76 Ooforectomizada + dieta 124.4 27.79 0.878 * CT1 Control 65.4 10.53 Control + dieta 60.2 15.72 Ooforectomizada 79.6 16.29 Ooforectomizada + dieta 108.6 30.74 0.019 *
60.6 48.72 56.2 29.78 97 16.61 61.4 56.73 104.6 19.78 44.4 22.2 79 35.93 0.2275
41.5 11.39 0.8338 * * 0.0431
45.2 7.85 74.4 37.67 35.6 8.56 65.4 28.06 52.8
9.36 * 67.4 24.08 62.8 23.06
0.09 74 38.37 0.9608 0.0431 0.0283 W. ONATRA € CoLs. EFECTO DELA DIETARICA ENGRASA (1%)SOBRE EL PERFIL LIPÍDICO EN CONEJAS OVARIECTOMIZADAS. IPARTE *Prueba de significancia P < 0.001 Kruskall-Wallis.
* * *Prueba de significancia P < 0.001 Kruskall-Wallis.
* Prueba de significancia p < 0.001 Kruskall-Wallis.
* Prueba de significancia P < 0.001 Kruskall-Wallis.
* Prueba de significancia P < 0.001. Kruskall-Wallis.
*Prueba de significancia P < 0.001, Kruskall-Wallis.
Cómo citar este artículo
Onatra W, Mendoza R, Lenis C, Forero G, Rodríguez A, Peña E, et al. Efecto de la dieta rica en grasa (1%) sobre el perfil lipídico en conejas ovariectomizadas. I parte. Rev Col Menop. 2009;15(3):219-235.
Onatra, W., Mendoza, R., Lenis, C., Forero, G., Rodríguez, A., Peña, E., Laverde, G., Gallego, C., Pc, E., Zúñiga, M., Ruiz, A., & Mt, R. (2009). Efecto de la dieta rica en grasa (1%) sobre el perfil lipídico en conejas ovariectomizadas. I parte. Revista Colombiana de Menopausia, 15(3), 219–235.
El archivo RIS se importa en Zotero, Mendeley o EndNote. Revisa los nombres de los autores: la cita se arma automáticamente a partir del artículo.