El hueso es un tejido conjuntivo con múltiples funciones, tales como albergar el sistema hematopoyético, sostener el peso corporal, soporte muscular, locomoción, protección de órganos vitales, reaccionar a los traumatismos, restaurador principal de la homeostasis del calcio, el fósforo, el magnesio y otros minerales y oligoelementos. El esqueleto humano está en un continuo proceso de regeneración el cual se lleva a cabo manteniendo un equilibrio entre la formación y resorción ósea. Este proceso está controlado por factores bioquímicos, mecánicos, celulares y hormonales con la intervención de varios factores de crecimiento y citoquinas, creando mecanismos de retroalimentación positivos y negativos. En el proceso de remodelado óseo existe un complejo sistema de regulación paracrina y de mensajes celulares a células que controlan el intercambio de nutrientes y por lo tanto la remodelación1. Para una buena comprensión del metabolismo óseo debemos conocer los componentes de la estructura ósea la cual tiene múltiples funciones.
Composición ósea
El hueso se clasifica como hueso trabecular o esponjoso y cortical o compacto. El primero es metabólicamente más activo que el hueso cortical. Está constituido por láminas de hueso horizontales y verticales conformando una trama que confiere resistencia mecánica a la estructura ósea. En la pérdida de masa ósea se adelgazan, se microfracturan y se pierde la conectividad entre las mismas, lo cual lleva a la pérdida de la resistencia mecánica e incremento del riesgo de fractura. El hueso trabecular se nutre desde su superficie y no tiene irrigación propia. Se encuentra en las vértebras, la pelvis y otros huesos planos.
El hueso cortical constituye el 70 a 80% del esqueleto. A nivel microscópico el hueso cortical se encuentra formado por sistemas Haversianos que comprenden túbulos de 2 nm de largo y 200 nm de diámetro entre los cuales se encuentran dispuestos los osteocitos (Figuras 1 y 2). En el centro de esta estructura se localiza un canal que contiene los vasos sanguíneos. El hueso cortical se encuentra fundamentalmente en los huesos largos y en la capa externa de los huesos trabeculares.
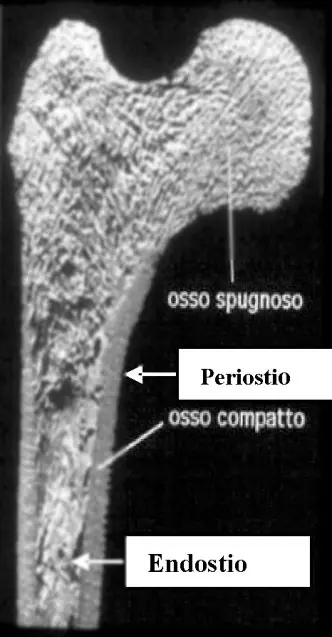
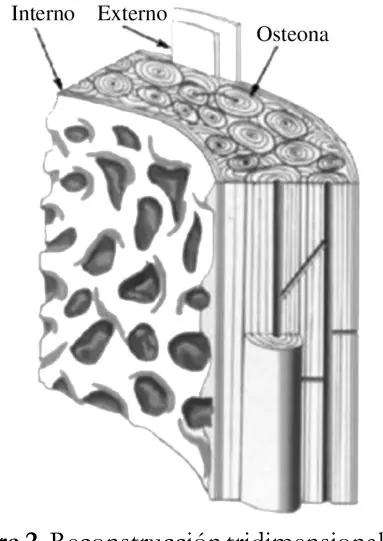
El hueso cortical consta de endostio en contacto con la cavidad medular; periostio en la superficie externa del hueso y el tejido cortical que se encuentra comprendido entre el endostio y el periostio (Figura 1). La remodelación ósea varía según la edad del individuo; durante la primera infancia se produce un aumento del hueso nuevo perióstico sobrepasando la destrucción que ocurre a nivel del endostio; durante la pubertad existe un aumento global del hueso cortical y de la masa ósea total; durante la vida adulta y el envejecimiento ocurre una pérdida paulatina de la masa ósea por un aumento de la pérdida del endostio el cual no es sustituido por el hueso perióstico, con el consecuente adelgazamiento progresivo de la cortical y el ensanchamiento de la cavidad medular. La resistencia ósea está dada en un 70% por la densidad ósea y en un 30% por la calidad del hueso. La densidad ósea está determinada por el pico de masa ósea y la pérdida de masa ósea. La calidad del hueso está determinada por la microarquitectura, la tasa de recambio, la geometría del hueso, y el grado de mineralización. El 80% del pico de la masa ósea está genéticamente determinado y realmente podemos actuar sobre un 20% modificando el estilo de vida y logrando efectos profilácticos y terapéuticos2. Se ha planteado la osteoporosis como una enfermedad genética, se han identificado múltiples genes potenciales, como los del colágeno Tipo I, los del receptor de la vitamina D3 y su polimorfismo y también a nivel del receptor estrogénico donde se han reportado mutaciones3. Todas estas alteraciones influirían en la génesis del proceso osteoporótico.
Tejido óseo
Está constituido en un 65% por hidroxiapatita y en un 35% por la matriz ósea, las células y el agua. Las células del tejido óseo son los osteocitos, los osteoblastos, los osteoclastos y las células de revestimiento. El componente mineral da rigidez y el colágeno da resistencia. La hidroxiapatita es una sal cristalina que constituye el contenido inorgánico del hueso, que se deposita en la matriz orgánica. Está compuesta por fosfato cálcico, carbonato cálcico, con pequeñas cantidades de magnesio, flúor y sodio4.
Matriz ósea
Un componente importante lo constituye el osteoide como matriz orgánica no mineralizada, segregada por los osteoblastos. La matriz ósea está constituida en un 90% por colágeno y el resto por lípidos y proteinglucanos especialmente condroitín sulfato y ácido hialurónico que ayudan a controlar el depósito de sales de calcio.
Células del tejido óseo
Osteoblastos Se derivan de células progenitoras mesenquimatosas multipotenciales de la médula ósea y de los pericitos. Las primeras también dan origen a los condrocitos, las células musculares y los adipocitos. Las segundas son células mesenquimatosas adheridas al endotelio vascular. La función de los osteoblastos es sintetizar matriz ósea, tienen una vida media de 12.5 días (300 horas), regulan la concentración local de calcio y fosfato, lo cual es fundamental para que la hidroxiapatita se deposite durante la mineralización (Figura 3).
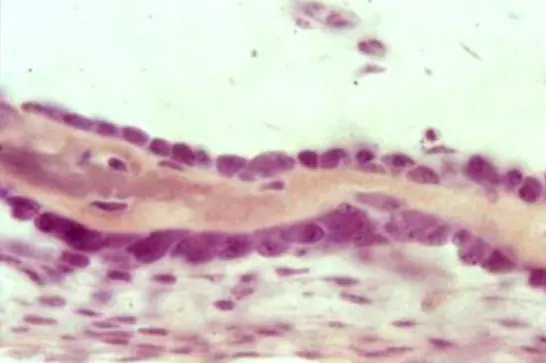
En sus membranas hay receptores hormonales para estrógenos, para el factor de crecimiento transformante TGF-ß, factor de crecimiento insulínico IGF y prostaglandinas. Tiene la capacidad de expresar el RANK-L (Ligando del receptor activador del Factor nuclear Kappa-ß). La principal proteína que sintetizan es el colágeno tipo 1 segregado de un precursor, el pro colágeno, con la extensión N-propéptido y C- propéptido. Produce además otras proteínas como los glicosaminoglicanos, la osteocalcinaosteopontina, la sialoproteína ósea, la fibronectina, la vitronectina y la trombospondina. Los osteoblastos expresan una fosfatasa alcalina específica del hueso, la cual actúa en el proceso de mineralización cuyo mecanismo exacto no se conoce. Una vez que los osteoblastos han completado la osteogenésis se incluyen en la matriz ósea y se transforman en osteocitos, o permanecen en la superficie como células de revestimiento, mientras que otros se ubican en la superficie del periostio y endostio y un remanente entra en apoptosis5-7. Osteocitos Son células derivadas de los osteoblastos, las más abundantes del hueso, encontrándose en proporción de 10:1 con los osteoblastos (Figura 4). Los osteocitos se comunican entre sí y con los osteoblastos por proyecciones citoplasáticas y al igual que los osteoblastos, se comunican con el endotelio, estableciendo un sincitio entre los osteocitos hasta la pared de los vasos sanguíneos (Figura 5).
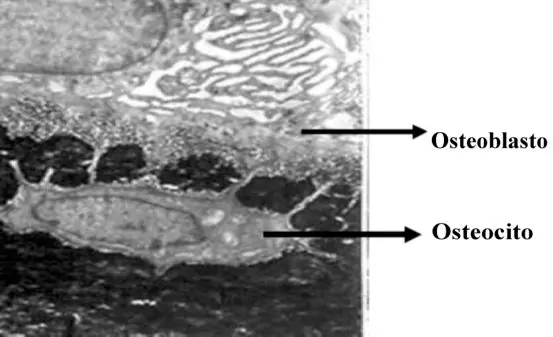
Los osteocitos provienen de los osteoblastos que quedan atrapados en las lagunas de la matriz ósea. Tienen diferentes funciones: controlan la concentración de Ca y fosfato extracelular, regulan el remodelado óseo en respuesta a los cambios del microambiente local; detectan las necesidades de formación ósea para lograr la adaptación esquelética y reparar las microlesiones, gracias a que son células mecano-sensibles emitiendo señales a los osteoblastos y osteoclastos. La pérdida de osteocitos altera la red celular y las señales bioquímicas causando una acumulación de microlesiones en la matriz celular.
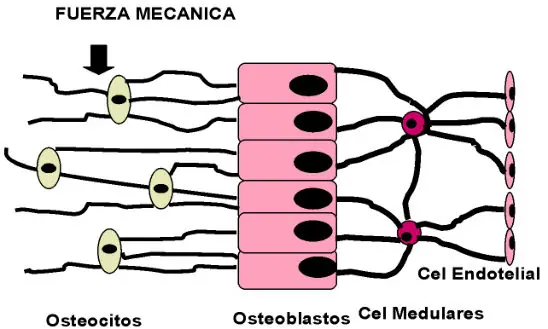
Estas células son sensibles a los cambios de hormonas como los estrógenos y glucocorticoides. El déficit de estrógenos parece que aumenta la muerte por apoptosis. El impacto de la menopausia en los osteocitos a largo plazo no se conoce con exactitud; sin embargo, el patrón de distribución de los osteocitos dentro y entre las trabéculas no se altera por la edad y la menopausia8,9. Osteoclastos Son células grandes multinucleadas, tienen abundantes mitocondrias, lisosomas y ribosomas (Figura 6). Se derivan de monocitos macrófagos de la médula ósea, constituyendo los preosteoclastos. Poseen un sistema de proyecciones digitiformes. Esta estructura está rodeada de una zona especializada denominada la zona clara, de aspecto homogéneo y con filamentos que forman un borde en cepillo, que delimita el área de fijación a la superficie ósea por donde irá la resorción. Las proyecciones digitiformes liberan hidrogeniones al medio que con las enzimas líticas lisosomales disuelven la matriz orgánica e inorgánica del hueso y el cartílago calcificado, produciendo las lagunas de Howship; acción realizada a través de proteinasas. El osteoclasto incorpora la matriz degradada por endocitosis y es trasladada al extremo celular contrario donde se libera a través de la membrana10. Células de Revestimiento Superficial – CRS Cuando los osteoblastos han completado la formación ósea uno de los caminos a seguir es convertirse en células de revestimiento. La superficie del hueso que no está en fase de remodelación (en reposo) está cubierta por una capa de matriz colágena no mineralizada, encima de la cual se encuentran las CRS, son planas y elongadas, segregan colagenasa que elimina la matriz o capa de colágeno no mineralizada que recubre la superficie del hueso normal eliminando la matriz antes de que puedan actuar los osteoclastos. Las CRS limpian las lagunas de Howship ya que digieren las fibrillas de colágeno dejadas por los osteoclastos e inician la formación del hueso, depositando una fina capa de matriz colágena11.

Fisiología del hueso
La fisiología del hueso está determinada por el metabolismo fosfocálcico que está regulado por la actividad hormonal sistémica y por mediadores locales como prostaglandinas, leucotrienos, IGF, TGFß (factor de crecimiento transformante beta); TNF (factor de necrosis tumoral). El calcio ionizado está regulado por tres órganos: riñón, hueso e intestino. La calcemia está determinada por los flujos de calcio existentes entre el líquido extracelular, la sangre y órganos como riñón, hueso e intestino. Las hormonas reguladoras del metabolismo óseo son la PTH, calcitonina, vitamina D, estrógenos, hormonas tiroideas, esteroides, factores de crecimiento, osteoprotegerina y leptina, las cuales serán tratadas con más profundidad en un próximo artículo.
Paratohormona PTH
Es la hormona más importante del metabolismo fosfocálcico. Ante la disminución de la calcemia se produce aumento de la resorción ósea promoviendo la movilización de calcio. Además reduce los niveles circulantes de fosfato e incrementa su excreción en la orina. La PTH aumenta la producción renal de 1,25 (OH)2 colecalciferol, lo cual produce un aumento en la absorción intestinal de calcio. Además controla la reabsorción de calcio en la porción distal de la nefrona.
1,25 Dihidroxivitamina D
Aumenta la absorción intestinal de calcio. Su producción es estimulada ante la hipocalcemia. A diferencia de la PTH que su regulación se realiza en minutos, la vitamina D requiere de horas a días. Su activación se inicia en la piel por acción del sol, produciendo colecalciferol el cual en el hígado es transformado a 25(OH)D3 (calcidiol). El calcidiol en riñón por acción de la 1a hidroxilasa se convierte a 1,25 (OH)2 D3 o calcitriol.
La vitamina D tiene acciones inmunomoduladoras estimulando la unidad formadora de colonias de fibroblastos lo cual lleva a la producción de células mesenquimatosas que se transformarán en osteoblastos. De igual manera, acciones pro-mineralización mediadas por prostaglandinas. Además se detectan receptores para vitamina D en la fibra muscular estriada, interviniendo en la mejoría del tono muscular lo cual a su vez contribuye a disminuir el riesgo de caída2,12.
Calcitonina
Se libera cuando la calcemia ha aumentado en un 10% con una respuesta rápida. Disminuye los niveles de calcio y fosfato en sangre. Inhibe la osteolisis y aumenta la excreción renal de calcio. Este mecanismo fisiológico es poco relevante en humanos.
Osteoprotegerina
Es una proteína inhibidora del reclutamiento y activación de los osteoclastos. Actúa uniéndose al receptor transmembránico RANK (Receptor para la activación del factor nuclear Kappa ß) localizado en la pared de los osteoclastos, impidiendo la unión a su ligando RANKL, ligando o activador del receptor para la activación del factor nuclear Kappa ß, expresado en la superficie osteoblástica.
Estrógenos
Las acciones sobre los procesos de resorción y formación ósea se basan en: inhibición del reclutamiento de los osteoclastos, mediado por la osteoprotegerina; aumento del número de osteoblastos. Producción de colágeno por parte de los osteoblastos. Aumento del RNA mensajero del TGF-ß y acciones genómicas y no genómicas.
Leptina
Es una de las últimas hormonas que ha sido incluida entre los reguladores de la fisiología ósea. Su acción se encuentra en estrecha relación con la PTH. El principal mecanismo de acción es una estimulación directa sobre la actividad osteoblástica promoviendo la síntesis de colágeno y una estimulación antiosteoclastogénica de la osteoprotegerina, promoviendo la mineralización ósea.
Unidad de remodelado óseo (URO)
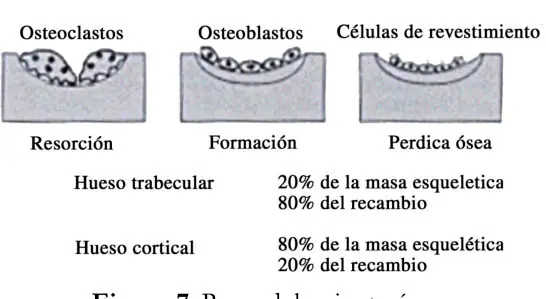
En condiciones normales el esqueleto se remodela continuamente. Un ciclo de remodelación ósea dura de tres a nueve meses y se completa cada diez años. El remodelado óseo es más activo a nivel del hueso trabecular, presentando un recambio anual del 40%, mientras que este fenómeno solo ocurre en un 10% del hueso cortical. El equilibrio o acoplamiento entre los procesos de formación y resorción ósea asegura la preservación de la masa ósea por un proceso complejo controlado por los osteoclastos, osteoblastos y osteocitos (Figura 7). La unidad de remodelado óseo es una estructura temporal multicelular de 1-2mm x 0.2-0.4 mm ligada al proceso de formación y resorción. Un adulto normal tiene en funcionamiento 3 a 4 millones de URO cada año y en cualquier momento hay un millón de dichas unidades en funcionamiento. El ciclo vital de la URO es superior al ciclo vital de las células participantes, lo cual indica que hay una actividad continua de incorporación celular para mantener el proceso hasta su terminación.
Proceso de remodelado óseo
Un ciclo de remodelación se inicia con la activación de un grupo de pre-osteoclastos llevada a cabo por el factor de crecimiento de colonias macrófagos (M-CSF) y citoquinas.
Las citoquinas estimulan la expresión en el osteoblasto y en células del estroma de la molécula RANK-L miembro de la familia de las citoquinas del Factor de Necrosis Tumoral (TNF), la cual se une al RANK ubicado en la superficie del osteoclasto y lo activa (Figura 8). El osteoclasto una vez activado produce la solubilización de la matriz ósea, liberando cistein-aminoproteinasas y metaloproteinasas además de la catepsina K la cual rompe la triple hélice del colágeno en múltiples puntos13-15. Al activarse el osteoclasto libera iones hidrógeno y lactato produciendo un ambiente ácido. La resorción ósea la completan los osteoclastos entre 4 y 12 días. En esta fase puede interferir la osteoprotegerina producida por los osteoblastos y unirse al RANK en vez del RANK-L e impedir la activación del osteoclasto o inducir su apoptosis16. A continuación un grupo de células mononucleadas emparejan la superficie horadada. Los siguientes siete a diez días la cavidad se rellena de un material pobre en colágeno y rico en proteoglicanos, glicoproteínas y fosfatasa ácida (Figura 8).
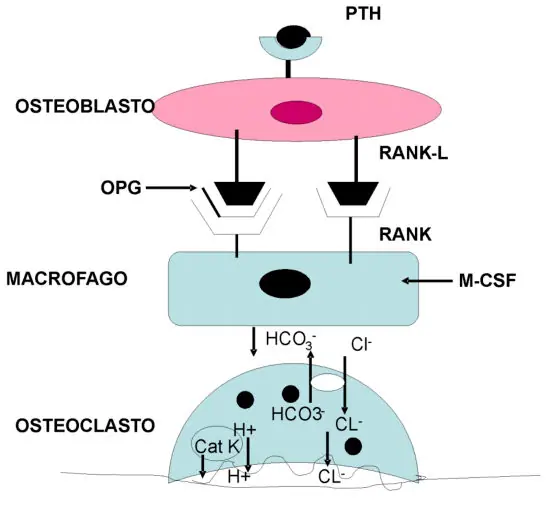
Ante estímulos como la PTH las células del estroma y los osteoblastos expresan M-CSF y al RANK-L el cual se une al RANK estimulando la osteoclastogénesis. La osteoprotegerina (OPG) bloquea los efectos del RANKL sobre el RANK de los macrófagos. El osteoclasto maduro produce diferentes proteinasas implicadas en la resorción ósea, entre las que se destaca la catepsina K (Cat K). Modificado de Teitelbaum SL.
Science 2000; 289: 1504-1508.
Posteriormente los osteoblastos se desplazan al sitio de remodelación influenciados por factores hormonales y factores de crecimiento y van recubriendo la superficie de la cavidad del hueso resorbido, depositando matriz osteoide y otras proteínas (fase de acoplamiento y formación). La matriz recién sintetizada, formada en un 90% por colágeno tipo 1, es posteriormente mineralizada con cristales de hidroxiapatita bajo la influencia de la vitamina D17-18. El grado de mineralización es una propiedad importante para el hueso; cuanto mayor es el contenido mineral, mayor será la rigidez y el estrés máximo que tolerará el hueso. Sin embargo, la resistencia del hueso disminuye cuando el contenido mineral excede al 65%. En el proceso de formación ósea en la URO el osteoblasto se podría considerar un fibroblasto más evolucionado; todos los genes de los fibroblastos son comunes con los osteoblastos, tan solo se ha identificado un factor de transcripción específico, Cbfa-1, (core binding factor a1) el cual codifica la expresión de osteocalcina6-8. En el control de la diferenciación de los osteoblastos se ha implicado a las principales familias de factores de crecimiento, varias proteínas morfogenéticas óseas (BMPs) capaces de inducir la expresión de Cbfa-1, la cual a su vez activa los genes específicos de la osteopontina, sialoproteína ósea, colágeno tipo 1 y osteocalcina. Estas actividades de síntesis son precedidas por la expresión de la fosfatasa alcalina como un marcador precoz de los preosteoblastos. Otros factores que estimulan la diferenciación de los osteoblastos incluyen el factor de crecimiento transformante (TGFß), factor de crecimiento derivado de las plaquetas (PDGF), factores de crecimiento insulínico (IGFs) y la familia de factores de crecimiento de fibroblastos (FGF).
Balance mineral y homeostasis: calcio, fósforo y magnesio
La homeostasis comprende todo el conjunto de mecanismos reguladores que permite a los sistemas biológicos mantener la estabilidad necesaria para la supervivencia. Una parte importante de la homeostasis es el control de las concentraciones séricas de calcio, magnesio y fósforo, las cuales varían dentro de un margen muy pequeño en el ser vivo. Esto obedece a que dichos cationes participan en un gran número de fenómenos metabólicos del organismo.
El calcio es muy importante en la conducción nerviosa, en la excitabilidad de la placa neuromuscular, es indispensable para establecer el potencial de membrana en las células excitables, forma parte del mecanismo secretor de diversas hormonas y de muchas enzimas citoplasmáticas, formando habitualmente complejos con la calmodulina. Además participa en la neurotransmisión, la mitosis y división celular, la fecundación y la coagulación sanguínea, y es el principal catión en la estructura cristalina de huesos y dientes. El fósforo es el constituyente más importante de los fosfolípidos de las membranas celulares; es el componente metálico de los nucleótidos de alta energía en las células; fosforila la proteinquinasa y algunas enzimas del borde en cepillo como respuesta a estímulos hormonales. El magnesio es un potente regulador de la acción de la hormona paratiroidea (PTH), pues afecta la respuesta de la adenilatociclasa y es un determinante del mecanismo sensor del calcio en la secreción de PTH. Es un potente inhibidor de la agregación y el crecimiento de oxalato de calcio y de otros cristales en la orina. Todas estas funciones aclaran la importancia biológica de estos elementos y explican por qué la naturaleza dispone de un sistema homeostático tan eficaz para su control. La homeostasis mineral se mantiene por la interacción de dos grandes sistemas: un sistema hormonal que puede considerarse como el componente modulador en el cual la hormona paratiroidea y la vitamina D tienden a conservar minerales y a elevar su concentración en el plasma. Por su parte la calcitonina tiende a disminuir la concentración de los minerales en el plasma. El otro componente, que es el efector, está constituido por un grupo de órganos blanco, cuyas principales funciones son la adquisición de minerales a partir de la dieta, su remoción o almacenamiento en las reservas corporales y su eliminación o conservación en los líquidos corporales.
El primer órgano blanco de estas hormonas es el esqueleto. Los huesos pueden actuar como grandes reservorios, liberando calcio cuando disminuye la concentración del mismo en el líquido extracelular y almacenándolo en situaciones de exceso. La concentración plasmática de calcio de aproximadamente 10 mg/dL circula así: 40% unido a proteínas, 10% unido a iones ultra filtrables capaces de difundir a través de las membranas y 50% en forma de calcio ionizado, este ultimo tiene una concentración de 1.2 mmol/L y es la forma en que el calcio ejerce la mayor parte de sus funciones en el organismo. Aproximadamente el 85% del fosfato corporal permanece almacenado en los huesos, el 14 a 15% es intracelular y menos del 1% se localiza en el líquido extracelular. En el adulto la dinámica esquelética se controla por el proceso de remodelado óseo. Las hormonas calcio-trópicas determinan la actividad remodeladora en respuesta a la demanda biomecánica impuesta por la actividad física y por un numeroso grupo de factores locales de origen humoral. El intestino es el sistema encargado de absorber calcio, fósforo y magnesio presentes en el bolo alimentario y en las secreciones entéricas. El riñón es el órgano que controla la excreción de calcio, fósforo y magnesio hacia la orina y define su balance corporal. La PTH ejerce influencia sobre la excreción de los tres minerales, disminuyendo la calciuria y la magnesiuria e incrementando la fosfaturia.
Homeostasis del calcio
El adulto normal tiene 1100 g de calcio en su cuerpo, del cual el 99% está en el esqueleto. En forma de hidroxiapatita. Aproximadamente el 0.1% del calcio corporal se localiza en el líquido extracelular y cerca del 1% se localiza en el interior de las células. El nivel de calcio total plasmático oscila entre 8.4 y 10.5 mg/dl en parte unido a proteínas y en parte difusible. El calcio iónico es el activo funcionalmente (calcio iónico normal: 4.6 - 5.1 mmol dL).
El hueso es un tejido con gran actividad metabólica que depende de un sincitio celular, que a su vez condiciona la remodelación esquelética. Cerca de 500 mg de calcio pueden ser recirculados por día, a partir de las URO, de modo que el hueso, como tejido dinámico que sufre un recambio diario, necesita para mantener el depósito, la extracción aproximada de 500 mg de calcio del pool extracelular a medida que se produce la osteogénesis, y regresando una cantidad similar a dicho pool en el proceso de osteólisis para equilibrar el balance18. Calcio intracelular Existen cuatro sistemas que promueven la entrada de calcio: - Entrada lenta pasiva de calcio.- Funciona continuamente en reposo y transporta sólo mínimas cantidades de calcio. - Canales voltaje dependientes o canales lentos calcio-sodio.- Permite la entrada de mayores cantidades de calcio al activarse eléctricamente. Algunos de estos funcionan para el sistema cardiovascular. - Canales activados por receptor o por hormonas.- Las hormonas vasopresoras como los agonistas alfa-adrenérgicos, vasopreina, angiotensina II y endotelina se unen a esos receptores y activan sus canales de calcio. - Canales activados por estiramiento. El ciclo biológico del calcio: absorción, excreción y reabsorción La concentración extracelular del ión calcio está determinada por la relación entre su absorción intestinal, su excreción renal y su captación y liberación ósea, todas ellas reguladas por las hormonas. La ingesta diaria recomendada de calcio varía con la edad y se considera apropiada en la posmenopáusica entre 1200 y 1500 mg. En condiciones normales oscila entre 200 y 2000 mg19. Los cationes divalentes como los iones de calcio se absorben mal en el intestino. Generalmente solo un 30 a 35% es absorbido de forma activa y pasiva, principalmente en el intestino delgado.
La absorción activa ocurre cuando el consumo de calcio es deficiente, depende de los niveles de vitamina D, los cuales a su vez disminuyen con la edad. La absorción es facilitada por la vitamina D la cual activa la síntesis de la proteína transportadora o proteína de Wassermann. Esta proteína fija el calcio de las células del epitelio intestinal y además funciona en el borde en cepillo para transportar calcio hacia el citoplasma celular. La intensidad en la absorción de calcio parece ser directamente proporcional a la cantidad existente de esta proteína fijadora, la cual además persiste en las células varias semanas después de que el 1.25 dihidroxicolecalciferol ha sido eliminado del organismo, provocando así una absorción prolongada de calcio20. La excreción de calcio se hace a través del tracto gastrointestinal y la vía urinaria. En los casos de lactancia materna, la excreción láctea a través de la glándula mamaria también representa una no despreciable composición de calcio en forma iónica. Al intestino llegan 250 mg/día adicionales de calcio proveniente de las secreciones de los jugos gástricos e intestinales y las células mucosas desprendidas y se excretan con las heces alrededor de 150 a 170 mg junto con la fracción dietética no absorbida. Como se observa, la mayor parte del calcio ingerido es eliminado en las heces. La excreción urinaria de calcio aproximadamente es el 10% del calcio ingerido (100-200 mg/día). El 90% del calcio filtrado es reabsorbido en el túbulo distal, siendo esto controlado por la PTH. Cuando la calcemia es baja, este mecanismo se intensifica al máximo (Figura 9). El metabolismo del calcio y su aprovechamiento está basado en la cantidad de calcio que se ingiere, en la absorción intestinal, en la excreción urinaria y la pérdida por las heces fecales. Se considera que el ingreso y la absorción del calcio influyen en un 25% del balance, mientras que la pérdida urinaria varía aproximadamente en un 50%. Las cifras aproximadas de recambio diario de calcio en el adulto son:
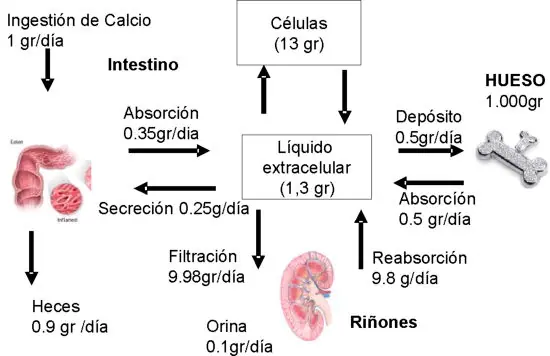
– Ingestión: 800 mg – Absorción intestinal 350 mg – Secreción en los jugos gastrointestinales 190 mg – Pérdida en heces 630 mg – Excreción en orina 170 mg – Remodelación Ósea 500 mg Intercambio de calcio entre el hueso y el líquido extracelular La mayor parte del calcio intercambiable está en el hueso entre el 0.4 y el 1% de todo el calcio óseo. Este calcio está depositado en los huesos en una forma de sal, fácilmente movilizable como CaHPO4 y otras sales amorfas de calcio. La importancia del calcio intercambiable es que brinda un mecanismo rápido de amortiguamiento para evitar que la concentración de calcio iónico de los líquidos extracelulares se eleve o descienda en exceso en situaciones transitorias de exceso o falta de disponibilidad de calcio. PTH , calcio y fosfato La hormona paratiroidea aumenta la absorción de calcio y fosfato en el hueso. La PTH parece tener dos efectos sobre el hueso que provocan absorción de calcio y de fosfato. Una fase rápida que se inicia en minutos y una fase lenta que requiere días a semanas21.
Las membranas celulares de los osteoblastos y osteocitos tienen proteínas receptoras que ligan la PTH, para ejercer su acción. Fase rápida de la absorción de calcio y fosfato Estudios histológicos y fisiológicos han mostrado que la PTH provoca la eliminación de sales del hueso de dos zonas: de la matriz ósea vecina a los osteocitos en el interior del propio hueso y de la vecindad de los osteoclastos a lo largo de la superficie del hueso. Los osteoblastos y los osteocitos forman un sistema de células interconectadas (sincitio) que se extiende por el hueso y sobre todas las superficies óseas excepto las pequeñas zonas de superficie adyacentes a los osteoclastos. Prolongaciones largas y laminares se extienden de un osteocito a otro por toda la estructura ósea y estas prolongaciones también conectan con los osteocitos superficiales y los osteoblastos. Este extenso sistema se denomina sistema de membrana osteocítica y se cree que representa una membrana que separa el propio hueso del líquido extracelular. Entre la membrana osteocítica y el hueso existe una pequeña cantidad de líquido que se denomina líquido óseo. La membrana osteocítica bombea iones calcio desde el líquido óseo al líquido extracelular, creando una concentración de calcio en el líquido óseo que es de solo 1/3 respecto a la del líquido extracelular. Cuando la bomba osteocítica se activa en exceso, la concentración de calcio en el líquido óseo desciende todavía más y entonces se reabsorben sales de fosfato cálcico del hueso. Este efecto se denomina osteólisis. Cuando la bomba se inactiva, la concentración de calcio del líquido óseo se eleva a un nivel más alto y se vuelven a depositar en la matriz sales de fosfato cálcico. Fase lenta de la absorción ósea Los osteoclastos no tienen receptores de PTH. Los osteoblastos y los osteocitos envían una señal a los osteoclastos haciendo que emprendan su tarea habitual. Varios días de exceso de PTH hacen que el sistema de osteoclastos se desarrolle bien. Tras unos cuantos meses de exceso de PTH la reabsorción osteoclástica del hueso puede hacer que los huesos se debiliten y se produzca una estimulación secundaria de los osteoblastos que intentan corregir la debilidad.
En un exceso persistente de PTH en fases más tardías existe más reabsorción que depósito de hueso.
Homeostasis del fósforo
Metabolismo normal del fósforo El contenido total del fósforo en una persona adulta sana de 70 kg de peso es aproximadamente de 7 g. El 80% está contenido en el hueso, 9% en el sistema músculo-esquelético y el resto en las vísceras y líquido extracelular. En el plasma, el fosfato inorgánico se encuentra en dos formas: HPO4-2 y H2PO4-2.
Dada la dificultad que implica determinar la proporción de ambos iones en sangre, se suele determinar la cantidad total de fosfato en términos de miligramos de fósforo por dL de sangre. La cantidad total media de fósforo inorgánico oscila alrededor de 3.4 a 4 mg/dl en el adulto. El ión fosfato es el principal anión intracelular y es el constituyente más importante de los fosfolípidos de las membranas celulares. El fósforo es el componente metálico de los nucleótidos de alta energía en las células, fosforila la proteinquinasa y algunas enzimas del borde en cepillo y también forma parte de la estructura cristalina del hueso. Ciclo biológico del fósforo: absorción y excreción La absorción en la luz del tubo digestivo es muy fácil, excepto los casos en que la alimentación contiene mucho calcio, caso en el cual se forman fosfatos de calcio casi insolubles que son excretados por las heces. El porcentaje de fosfato absorbido por la dieta permanece relativamente constante. La excreción se hace a través del tracto gastrointestinal y urinario; también a través de la glándula mamaria en las mujeres que están lactando. El flujo de fosfato a través del epitelio gastrointestinal se ve incrementado por la acción de la vitamina D. Una dieta bien equilibrada provee de 1000 mg de fósforo cada día y tiende a ser más alta en aquellas personas que consumen grandes cantidades de carne o productos lácteos. Cuando la alimentación contiene mucho calcio se forma fosfato de calcio casi insoluble que continúa su tránsito intestinal y es excretado por las heces, la excreción es del orden de 70%.
La fosfaturia es directamente proporcional a la fosfatemia, este efecto se encuentra regulado por la acción de la PTH a través de un mecanismo de rebosamiento el cual está dado por un nivel crítico de 1 mmol/L, si la concentración es menor de este nivel se reabsorbe todo el fosfato del filtrado glomerular. La PTH tiene una gran capacidad para aumentar la excreción de fosfato por parte del riñón. Las personas que ingieren una dieta mixta normal excretan en su orina entre el 60 y el 90% del fósforo ingerido. El balance de fosfato diario promedio de un adulto es: – Ingesta 900 mg – Absorción 600 mg – Excreción fecal 300 mg – Excreción Urinaria 600 mg – Remodelación ósea 250 mg
Homeostasis del magnesio
Metabolismo normal del magnesio El magnesio es el segundo electrolito intracelular más abundante y el cuarto catión en el organismo precedido por calcio, sodio y potasio. Su importancia fisiológica radica en la preservación del potencial eléctrico de la membrana en células excitables y es importante como cofactor de diversas enzimas.
El catión divalente magnesio se encuentra en el líquido extracelular e intracelular siendo más abundante en este último. Regulación del magnesio sérico El magnesio es un mineral casi sin depósito y cuyo nivel plasmático depende fundamentalmente de la ingesta diaria. El magnesio plasmático también depende de la concentración de otros cationes como el Ca y K, puesto que compite en el nivel renal con los mismos mecanismos de reabsorción tubular. Distribución del magnesio en el organismo El contenido corporal total de magnesio es de unos 25 mg. De todas las reservas corporales de magnesio, del 53 al 60% se encuentran en el hueso y del 20 al 27% en el músculo estriado. Únicamente el 30% del magnesio óseo y del 20- 30% del magnesio muscular se encuentra libre o en una reserva fácilmente intercambiable.
En el hueso el magnesio existe en dos formas, cerca del 70% del magnesio óseo es removido relativamente fácil con ácidos diluidos, mientras que el 30% restante está íntimamente asociado con el hueso. El magnesio removible se encuentra en la superficie de los cristales, en el grupo fosfato de los cristales de hidroxiapatita, mientras que el magnesio firmemente unido está integrando parte de la trama cristalina ósea. Existen muy pocas reservas corporales, sólo el 1% del magnesio esquelético es intercambiable en una hora, en una semana solo se intercambia el 5% La concentración de magnesio en el plasma es de 1.7 a 2.4 mg. En tejidos blandos el 80% del magnesio se encuentra en el sistema músculo-esquelético. Magnesio en el líquido extracelular La concentración plasmática está comprendida entre el 1.4 y el 1.7 ó 2 m Eq/L. El magnesio del plasma está ligado a proteínas. La concentración de magnesio difusible es menos precisa que la del calcio, representa del 65 al 67% del total. El calcio y el magnesio compiten por los mismos puntos de unión de las proteínas. La competencia por los mismos receptores proteicos también significa que si la concentración de calcio aumenta, la de proteinato de magnesio disminuirá y la de iones magnesio aumentará. Otras formas de magnesio en el nivel plasmático son: – Magnesio iónico libre 55-60% – Ligado a HPO4 3%
– Ligado a citrato 4% – Otras formas (bicarbonato) 6% – Magnesio proteico 32% Ciclo biológico del magnesio: absorción, excreción y reabsorción Las necesidades diarias son de 300 a 350 mg/día en el adulto. La disponibilidad de magnesio dietario es baja; la absorción se realiza preferiblemente en el intestino delgado y está condicionada a muchos factores como relación calcio/magnesio, relación magnesio / PO4, relación K/magnesio. Dado que el magnesio se mueve pasivamente a través de la pared del intestino delgado, la concentración de magnesio disponible en la dieta, y el tiempo de contacto entre el alimento digerido y la superficie de absorción, son los factores responsables más importantes en la absorción de este ión. La absorción del magnesio es pasiva y se efectúa a nivel del íleo. El magnesio es excretado por vía gastrointestinal, comprende el contenido en la dieta y no absorbido, y el endógeno. El no absorbido varía con el tipo de dieta, las relaciones calcio/magnesio, potasio/magnesio, fósforo/magnesio y la cantidad de NH3 tanto luminal como intestinal. La excreción urinaria del magnesio se realiza por un mecanismo de filtración-reabsorción, en el cual el proceso de reabsorción funciona cerca de su máximo y la excreción de magnesio es en parte dependiente de otros iones. En condiciones normales todo el magnesio absorbido aparece íntegramente en la orina. Entre el 70% y el 80% del magnesio plasmático es filtrado en el glomérulo. Los principales factores que regulan el transporte tubular de magnesio son: 1. Concentración plasmática: la hipomagnesemia aumenta el transporte, disminuyendo su excreción. 2. El calcio: la hipercalcemia se asocia a hipercalciuria e hipermagnesiuria. 3. Factores que producen cambios en el voltaje y permeabilidad en el asa ascendente de Henle interfiriendo con la reabsorción de NaCL.
4. PH: la alcalosis metabólica estimula y la acidosis inhibe la reabsorción. 5. El potasio: la hipopotasemia y la depleción de fósforo inhiben la reabsorción tubular. La excreción láctea también presenta una no despreciable composición de magnesio, en forma iónica, asociado a coloides o en otras formas.
Referencias
- National Institutes of Health. Osteoporosis. Consensus Development Conference Statement. March 27-29. J Clin Endocrinol Metab. 2001; 86(12): 5681-5686.
- Wagner EF, Karsenty G. Genetic control of skeletal development. Curr Opin Gen Develop 2001; 11: 527-532.
- Guzmán R. Osteoporosis: Inmunología de la Enfermedad, aspectos celulares, moleculares y genéticos. Revista Colombiana de Menopausia. 2003; 9: 317-325.
- Guyton-Hall. Edición 10a 2001.Tratado de fisiología médica, pp. 1079-1098.
- Ducy P, Schinke T, Karsenty G. The osteoblast: a Sophisticated fibroblast under central surveillance. Science 2000; 289: 1501-1504.
- Karsenty G. Transcriptional control of osteoblast differentiation. Endocrinology 2001; 142: 2731-2733.
- Skillington J, Choy L, Derynck R. Bone morphogenetic protein and retinoic acid signaling cooperate to induce osteoblast differentiation of preadipocytes. J Cell Biology 2002; 159: 135-146.
- Tomkinson A, Gevers EF, Wit JM, Reeve J, Noble BS. The role of estrogen in the control of rat osteocyte apoptosis. J Bone Miner Res 1998; 13: 1243-1250.
- Qiu S, Rao DS, Palnitkar S, Parfitt AM. Age a distance from the surface but not menopause reduce osteocyte density in human cancellous bone. Bone 2002; 31: 313-318.
- Teitelbaum SL. Bone Resorption by Osteoclasts. Science 2000; 289: 1504-1508.
- Everts V, Delaisse JM; Korper W,Jansen DC, Tigchelaar-Gutter W; Saftig P y cols. The bone lining cell: Its role in cleaning Howship´s lacunae and initiating bone formation. J Bone Miner Res 2002; 17: 77-90.
- Pfeifer M, Begerow B, Minne HW. Vitamin D and muscle function. Osteoporosis Int 2002; 13: 187-194.
- Bossard MJ, Tomaszek TA, Thompson SK, Amegadzie BY, Hanning CR, Jones C, and cols.Proteolytic activity of human osteoclast cathepsin K-expression, purification, activation, and substrate identification. J Biol Chem 1996; 271: 12517-12524.
- Delaissé JM, Engsig MT, Everts V, Ovejero MC, Ferreras M, Lund L y cols. Proteinases in bone resorption: Obvious and less obvius roles. Clin Chim Acta 2000; 291: 223-234.
- Atley LM, Mort JS, Lalumiere M, Eyre DR. Proteolysis of Human bone collagen by cathepsin K: characterizacion of the cleavage site generating the cross-linked N-telopeptide. Bone 2000; 26: 241-247.
- Wittrant Y, Couillaud S, Theoleyre S, Dunstan C, Heymann D, Rédini F. Osteoprotegerin differentially regulates protease expression in osteoclast cultures. Med Chem 2004; 47:
- 599.
- Burr DB. The contribution of the organic matrix to bone´s material properties. Bone 2002; 31: 8-11.
- Wang X, Shen X, Li X, Agrawal CM. Agerelated changes in the collagen network and the toughness of bone. Bone 2002; 31:
- 7.
- The North American Menopause Society. The role of calcium in Peri and Posmenopausal women 2006 position statement. Menopause 2006; 13: 862-877.
- Brown AJ, Dusso A, Slatopolsky E. Vitamina D. Am J Physiol 1999; 277: F157.
- Brown EM. Extracelular Ca+2 sensing regulation of parathyroid cell function and role of Ca+2 and other ions as extracelular (first) messenger Physiol Rev. 1991; 71: 371.
Afiliaciones y notas
Recibido para publicación enero 16 2008.
Revisado y aceptado 25 de abril de 2008 * Del grupo de expertos en Menopausia del Centro Médico Imbanaco. Cali Colombia.
Cómo citar este artículo
González M, Torres C, Coronel J, Canaval H, Guel Bueno M, Cuadros Á, et al. Metabolismo óseo y osteoporosis. Rev Col Menop. 2008;14(3):187-198.
González, M., Torres, C., Coronel, J., Canaval, H., Guel Bueno, M., Cuadros, Á., Alfaro, S., & Y Gustavo Gómez, A. E. (2008). Metabolismo óseo y osteoporosis. Revista Colombiana de Menopausia, 14(3), 187–198.
El archivo RIS se importa en Zotero, Mendeley o EndNote. Revisa los nombres de los autores: la cita se arma automáticamente a partir del artículo.