1. Introducción
El tejido graso era inicialmente mirado como un tejido de recubrimiento y protector de la piel. A medida que se fueron descubriendo sus funciones vemos que se trata de una unidad endocrina y paracrina que modula un sinnúmero de procesos metabólicos. El adipocito obtiene su energía a través de la betaoxidación mitocondrial de los ácidos grasos y su exceso se almacena como triacilglicerol (TAG) permaneciendo como reserva dependiente de la lipoproteína lipasa (LPL) citosólica. Con el fin de almacenar, transformar y utilizar la energía existen dos clases de tejido adiposo; el tejido adiposo blanco (WAT de las siglas inglesas) con células uniloculadas de depósito y el tejido adiposo pardo (BAT) que posee células multiloculadas productoras de calor. La función principal del WAT es el almacenamiento de lípidos y liberarlos de acuerdo a los requerimientos a diferencia del BAT que posee un gran número de mitocondrias y un sistema enzimático que inicia una segunda conductancia que no genera ATP sino un desacoplamiento metabólico en estos organelos con producción de calor. La vascularización está aumentada y la relación volumen capilar / volumen citoplasmático es mayor en el tejido graso que el muscular. El control neuronal es de origen adrenérgico; sin embargo, el BAT posee receptores B3 membranales que inducen termogénesis y modificaciones en la eficacia que se utilizan los sustratos siendo una vía alterna para transformar la ganancia de peso por unidad de nutriente ingerido. Su localización es general con una distribución especial en la mujer y el BAT
Recibido: marzo 10/2007 - Aceptado: agosto 15/2007 se encuentra en el cuello, región dorsal del tronco, axilar, suprarrenal, riñón y región inguinal 1, 2.
Su función es bien conocida como aislante térmico, protector de órganos, modulador del contorno corporal especialmente en la mujer, reservorio energético, recientemente demostrado que participa en el control del apetito, en el mantenimiento del peso corporal y como regulador global del metabolismo energético3.
2. Diferenciación celular
Las células adiposas proceden del mesodermo. De acuerdo a los estímulos se puede diferenciar hacia fibroblastos o hacia adipocitos. La mayoría de los efectores que inducen diferenciación de los preadipocitos primarios a células grasas maduras incluyen las 3T3-F442A, 3T3-L1, y ob 17; algunas diferencias de estas pueden ser debidas al estadio en que actúan los diferentes inductores de diferenciación como el FBS +1, +D, +M4. Se ha observado que en cultivo de adipocitos se promueve la diferenciación celular por medio del Factor derivado de los adipocitos (FA) que se produce en cultivo de adipocitos diferenciados. Se ha reportado que en el endotelio capilar se liberan factores que a su vez liberan e impulsan la multiplicación y la diferenciación, lo que sugiere que la matriz extracelular es la causante de esta actividad5. Los preadipocitos se han visto involucrados en la diferenciación al colocarlos en cultivo de preadipocitos de humanos con obesidad masiva, encontrándose que aumentó cuatro veces la proliferación en comparación con los individuos no obesos, infiriendo que existe un circuito autocrino semejando la proliferación del preadipocito hacia la hiperplasia tisular que ocurre en la obesidad6.
El compromiso de las células totipotenciales de la línea adipocítica y su diferenciación de preadipocitos a adipocitos ocurre no solo durante la embriogénesis sino también cuando el organismo se ha desarrollado. Existen factores endocrinos y paracrinos involucrados en la diferenciación del adipocito.
2.1. Factores endocrinos
Insulina: la insulina promueve la diferenciación solamente en concentraciones suprafisiológicas y sus efectos son mediados a través de la IGF-1. Se sabe que la insulina se une al receptor IGF-1 con baja afinidad y puede reproducir todas las acciones de la IGF-17, factor que estimula la diferenciación a concentraciones menores y parece ser el inductor fisiológico. Factores similares a la insulina IGF-1: es categorizado como el inductor fisiológico de la diferenciación sobre las células 3T3-F442A cultivadas en suero fetal bovino. Este efecto no se ve cuando se administra hormona de crecimiento, EGF, o el factor derivado de las plaquetas8. Glucocorticoides: son estimulantes energéticos de la diferenciación de los adipocitos de origen 3T3-L1 y TA-1, actúan directamente en la transcripción celular. No se conocen los genes relevantes de la trascripción. Un posible candidato es el factor de trascripción C/EBPgama; por otro lado los glucocorticoides inhiben la fosfolipasa A2 y por esta vía puede contrarrestar el efecto inhibitorio de las prostaglandinas9. Triiodotironina (T3): se requiere para la diferenciación de células OB-17, la cual se bloquea al adicionar 8-bromo cAMP10.
Hormona de Crecimiento (HC): se describe su implicación en la diferenciación del adipósito. La depleción inmunológica de la HC en suero fetal bovino presentó interferencia en las células 3T3- F442A y OB-1771 que requirieron HC para su inducción11. Factores de Crecimiento: existen varios factores de crecimiento que inhiben la diferenciación del adipocito como el Factor de Crecimiento Epidérmico (EGF), el de transformación de alfa (TGFα) y beta (TGFβ), el factor de crecimiento fibroblástico básico (bFGF). En trabajos experimentales se ha podido demostrar que el EGF inhibe la diferenciación de los adipocitos y la inyección diaria en ratas disminuye la masa grasa de acuerdo a la dosis12. El TGFα inhibe la diferenciación de las células 3/3- F442A confirmándose que en ratones transgénicos la sobre-expresión de TGFα presentó una disminución del 50% de la grasa corporal comparada con los ratones no transgénicos13. Ácido Retinoico (RA): estudios experimentales han demostrado que el RA participa como inhibidor del tejido graso. En dosis bajas inhibe la diferenciación de líneas celulares sin afectar la síntesis de DNA o la multiplicación celular. Dosis elevadas bloquean la diferenciación de células embrionarias mesodérmicas y promueven su conversión hacia un fenotipo ectodérmico neuronal14.
2.2. Factores paracrinos
Proteína estimulante de la acilación (ASP): esta proteína se encuentra originada por el cambio de C3 en la cascada del complemento por interacción del factor β de la seri-adipsin-proteasa, que se sobre-expresan en el paciente obeso15. La ASP induce la diferenciación de los preadipocitos a adipocitos y la síntesis del triacilglicerol.
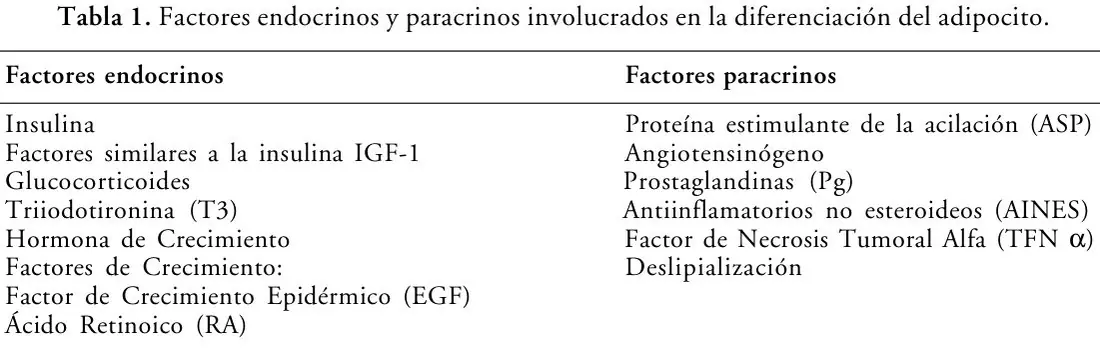
Angiotensinógeno: interviene tanto en la diferenciación del nuevo adipocito como en la función de células maduras. La forma activa de la Angiotensina II se genera por la acción de la enzima convertidora (ECA) en el tejido adiposo16. El antagonismo de los receptores de angiotensina suprime la hipertrofia adiposa y los inhibidores de la ECA aumentan la sensibilidad a la insulina17. Estos hallazgos son consistentes al encontrarse que los receptores de angiotensina aumentan con la masa de tejido graso, dieta alta en grasa. El mecanismo de acción de la angiotensina en el adipocito como en el resto de los tejidos obedece a la estimulación de la síntesis de prostaciclina (PGI2)18. Prostaglandinas: El tejido graso produce tres tipos de prostaglandinas (PGs): la PGE2, la prostaciclina y niveles bajos de PGF2α. Participan en la regulación del flujo sanguíneo, lipólisis y diferenciación celular. Estas prostaglandinas inhiben la diferenciación de las células 3T3-L1 y TA-1 al parecer mediada por un receptor prostanoide que activa la fosfolipasa C que lleva a su vez a un incremento de la producción de trifosfato de inositol y de calcio intracelular19. Si se adiciona un inhibidor de la cinasa dependiente de calmodulina (KN62), su efecto se antagoniza. Por otra parte, el efecto supresor de ciertas prostaglandinas sobre la diferenciación y la síntesis tanto a nivel de la liberación del ácido araquidónico como la conversión del araquidonato a prostaglandina por vía de la ciclooxigenasa estimula la diferenciación del tejido graso. Su unión a otros receptores membranales son ligandos de receptores activados proliferadores de peroxisoma (PPARs), conjunto de proteínas nucleares que juegan un papel importante en la diferenciación del adipocito20. Es decir las PGs pueden desempeñar un papel doble en la diferenciación dependiendo del tipo de receptor donde actúen. Antiinflamatorios no esteroideos (AINES): los inhibidores de la ciclooxigenasa como la indometacina o ibuprofeno sustituyen a los glucocorticoides para inducir la diferenciación adipogénica9; contrariamente a la diferenciación de células OB-1771 estimulada por la prostaciclina, produce un aumento transitorio del calcio intracelular. Factor de Necrosis Tumoral alfa (TNFα): uno de los productos que labora el tejido graso es el TNFα; es un potente inhibidor de las células 3T3-L1 y TA-1 y represor del fenotipo adiposo de células maduras que produce además una desdiferenciación celular21.
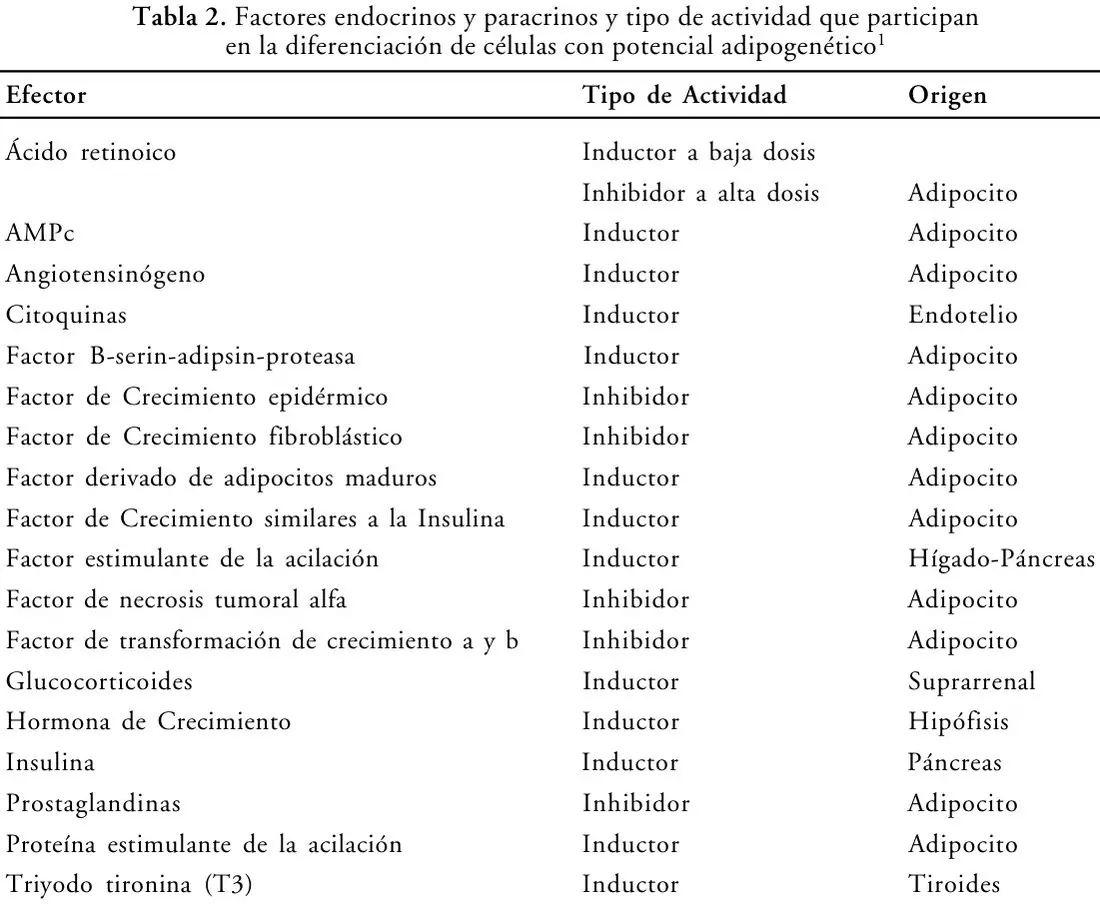
Deslipialización: son cambios que se presentan en los adipocitos maduros por inhibición de la expresión de la esteaoril CoA desaturasa de 422/ aP2 y Glut 4, precedidos por una disminución de la expresión C/EBPα, desconociéndose si esto es causa o un efecto de la diferenciación22. De acuerdo a la actividad que desarrollan estos factores endocrinos y paracrinos se resumen en la proliferadores de peroxisomas-(PPARS) que han sido identificados por la activación por sustancias que inducen proliferación de peroxisomas en las células. Hay evidencia de que este conjunto de factores de transcripción participan en la diferenciación del adipocito; existen además otros tipos celulares que activan estos receptores de origen conjuntivo como los preadipocitos, mioblastos, células multipotentes C3H10T1/2, expresión ectópica de ciertas variantes PPAR que en presencia de ligandos pueden inducir diferenciación de fibroblastos N1H-3T325. Las isoformas de PPAR se unen como complejos heterodímeros con los receptores retinoides (RXRs) para elementos de respuesta (PPRE/DR-1, repeticiones directas de la secuencia RGGTCA separada por una base). Estos efectos han sido identificados en gran número de genes del adipocito incluyendo carboxiquinasa- fosfoenolpiruvato, lipoproteinlipasa, la proteína de unión de ácidos grasos 422/ap2 y la estearil-CoA desaturasa26.
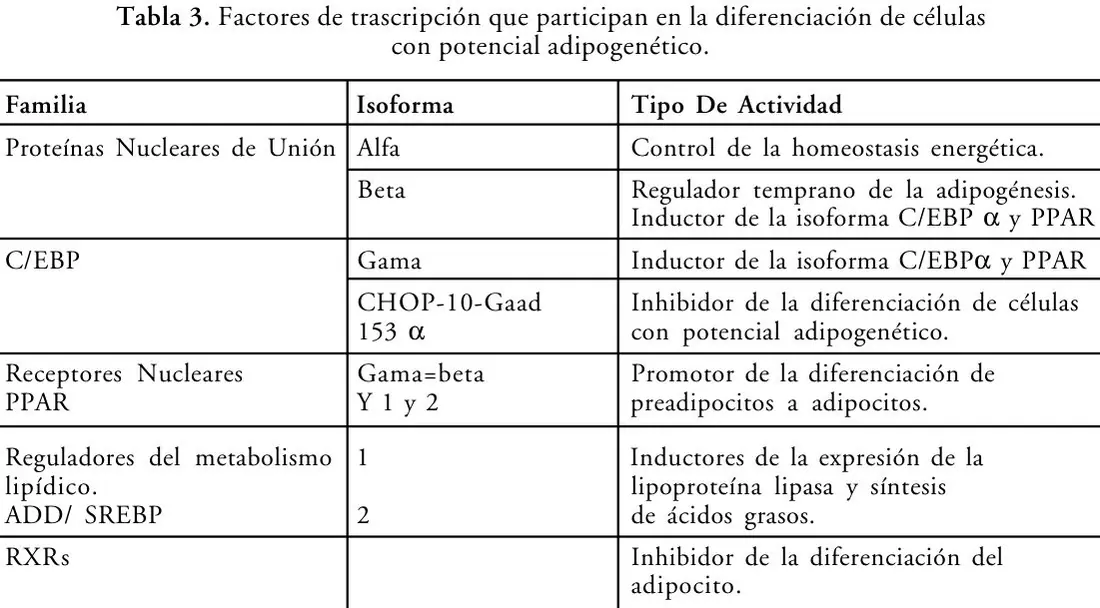
Existen diferentes variantes de PPAR: las isoformas PPARy1 y 2; estas dos isoformas se expresan en el tejido adiposo especialmente el PPARy2. Hay otras isoformas PPAR α, PPAR β, PPAR delta; esta última es inducida durante la diferenciación de las células OB-1771. Su transcripción está inducida por sus ligandos, aunque los ácidos grasos y sus metabolitos, algunos fármacos hipolipemiantes y antidiabéticos (tiazolidinedionas) han mostrado activación de la familia de PPAR. Otras sustancias como los derivados del ácido araquidónico, un análogo de la prostaciclina (carbaciclina), leucotrienos Bα y B8, HETES activan los PPARε27. La insulina estimula sinérgicamente el potencial de transactivación de toda la familia PPAR; dicha actividad es dependiente de la proteincinasa mitogénica activada (MAP); no se ha demostrado que requiera de fosforilación directa de PPAR por esta enzima. El MAP fosfororila un grupo de sitios N-terminal de PPARε en respuesta a factores de crecimiento, produciendo interferencia sobre la transactivación y por lo tanto un efecto negativo, determinando que la Insulina pueda ejercer un efecto positivo y otro negativo por el MAP28.
3.3. Familia ADD1/SREBP1
Esta familia representa la participación del Factor 1 dependiente de la Diferenciación y Determinación del adipocito (ADD1) y de la proteína 1 de elementos de unión con un esterol regulatorio (SREBP1); es un factor de transcripción helix-asa-helix básico (bHLH). ADD1/ SREBP1 activa la transcripción a través de cada uno de los nucleóticos Caja E (ATCACGTGA) y el esterol regulatorio (ATCACCCAC). En estas condiciones este factor induce la expresión de la lipoproteinlipasa (LPL) y de los genes de los ácidos grasos (FAS), con el consecuente aumento en la síntesis de ácidos grasos, su captación y acumulación en el tejido graso29.
3.4. Actividad de transcripción del RXRs
Es conocido que el Ácido Retinoico (AR) participa en la inhibición de la diferenciación de los adipocitos; sus efectos son mediados por dos clases de receptores nucleares: los RARs y los RXRs. El uso de ligandos específicos ha implicado al RAR como el factor de mayor efecto inhibitorio en la diferenciación del adipocito. Existe una interrelación entre los receptores RARs y los PPAR; por una parte los RARs se unen al DNA como heterodímeros RXRS y los PPAR heterodimerizan con RXRs, sugiriendo que los RARs inhiben la diferenciación por competencia con los PPAR por su heterodimerización asociada30.
4. Factores hormonales y paracrinos que regulan el adipocito
El adipocito es una célula con una capacidad de respuesta a señales centrales o periféricas con producción de diferentes proteínas que modulan la homeostasis energética (leptina, adiponectina, resistina), vascular (Factor de Necrosis Tumoral, Interleuquina-6), lipoproteínas (Lipoproteinlipasa), respuesta aguda (Alfa-1 ácido glicoproteína, suero amiloide A (SSA), endotelial (Monobutirin), factor de crecimiento vascular (VEGF). Gráfica 1.
4.1. Moléculas que regulan la homeostasis
Leptina La leptina fue la primera molécula descrita asociada a una mutación monogénica responsable de la morbilidad en el fenotipo de ratones obesos. Es una hormona que se expresa en el tejido adiposo, circulación y líquido cefalorraquídeo. Su concentración en suero correlaciona proporcional al Índice de Masa Corporal (IMC) con valores de 1- 10 ng / ml. Por pasar con facilidad por la barrera hematoencefálica funciona como un signo aferente en el SNC desde el tejido adiposo, se localiza en el núcleo arcuato del hipotálamo y en la región conocida como centro de control de la saciedad. Se describen sus funciones a nivel central como regulador de ingesta de alimento, peso corporal y control de energía; a nivel periférico se ha descrito su acción en el músculo esquelético, hígado, páncreas, tejido adiposo31.
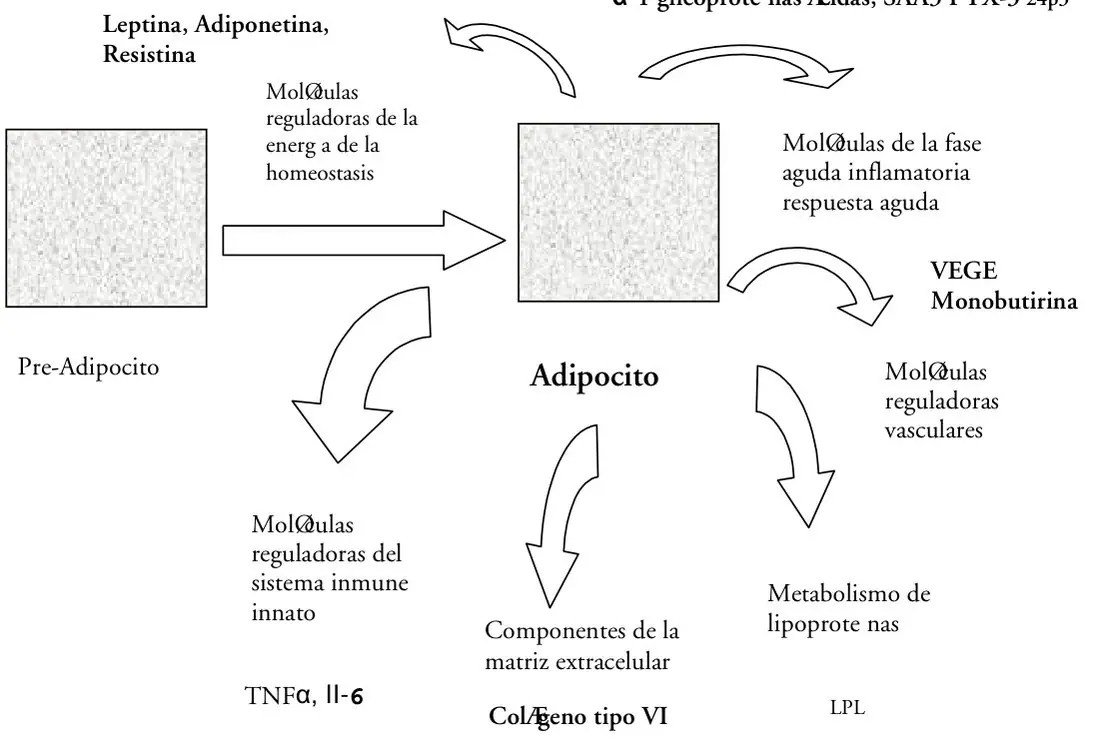
La leptina disminuye el peso corporal y la masa adiposa por incremento de la energía y disminución de la ingesta. Se postula que su mecanismo de acción está relacionado con el aumento del 5- AMPc activando la proteinquinasa (AMPK) la cual actúa en músculo, hígado y SNC. Una vez activa AMPK disminuye el consumo de ATP afectando las vías anabólicas como la transcripción de glucosa, síntesis proteica, síntesis de colesterol, ácidos grasos y triglicéridos e incrementando las vías catabólicas como el transporte de glucosa, β- oxidación, glicólisis y biogénesis mitocondrial32.
α-1 glicoprote nas Æcidas, SAA3 PTX-3 24p3
Otras funciones atribuidas a la leptina se relacionan con los procesos fisiológicos de la fertilidad, la respuesta inmune, el eje hipotálamohipófisis suprarrenal. Se ha observado que estados de inmuno-supresión correlacionan con estados de desnutrición asociados a disminución de la leptina y alteración de los linfocitos T. Por otra parte modifica la hormona de crecimiento, prolactina, y tiene un ritmo circadiano con elevación en horas de la mañana33.
Adiponectina La adiponectina es una proteína de 30 kDa, compuesta de 244 aminoácidos, secretada en el tejido adiposo con concentraciones en suero humano de 5-30 nM y dos a tres veces mayor en las mujeres que en los hombres. Se postula que podría desempeñar un papel preventivo en la RI, arteriosclerosis y propiedades anti-inflamatorias. Aunque en roedores existe una regulación positiva directa del gen de la adiponectina por la insulina, en humanos es muy poco probable porque no hay modificación de la adiponectina en el período postprandial. Un análisis sobre la relación de la adiponectina y diabetes tipo 2 evidenció una disminución de sus niveles con un aumento del IMC; esta disminución se correlacionó con una disminución de la sensibilidad a la insulina34. Es conocido que la adiponectina está disminuida en la obesidad, Diabetes Mellitus tipo 2 (DM2) y enfermedad cardiovascular, condiciones comúnmente asociadas a la RI.
Estudios genéticos han demostrado que un polimorfismo en el locus para adiponectina 3q27 podría afectar los niveles circulatorios y un aumento en el riesgo de desarrollar diabetes tipo 235. El receptor activado proliferador de los peroxisomas (PPAR) y agonistas incrementan la expresión en las concentraciones de adiponectina así como una disminución plasmática de TNFα. El TNFα aumenta localmente en el tejido adiposo en pacientes obesos y posiblemente estos altos niveles disminuyen las concentraciones de adiponectina36. La sobre expresión de la adiponectina en la apolipoproteína E (ApoE) en modelo de ratón demostró que reduce la arteriosclerosis severa y aumenta los receptores de TNFα. En forma similar un aumento de la placa ateromatosa se ha observado en ratones con déficit de adiponectina o cuando se produce una lesión endotelial; además en pacientes diabéticos con enfermedad cardiovascular han mostrado tener menos adiponectina que los diabéticos sin esta enfermedad37. Es conocido que un imbalance en la secreción de insulina y una disminución de la sensibilidad periférica caracteriza la patogénesis de la diabetes tipo 2. La ablación del receptor de insulina en el adipocito (FIRKO) causa un incremento en los niveles de adiponectina. Por otro lado la ablación en los adipocitos de la captación de la glucosa estimulados por la insulina y del transportador de glucosa (GLUT4) resulta en una alteración de la sensibilidad a la insulina en músculo e hígado con disminución de adipoquina38. La reducción en la gluconeogénesis fue debida a una disminución de la expresión de la glucosa-6-fosfatasa (G6Pasa) y de la fosofoenolpiruvato carboxiquinasa (PEPCK) resultando en una disminución de la producción de glucosa hepática. La adiponectina actúa en músculos aumentando el flujo y la oxidación de ácidos grasos, reduciendo el contenido de TG en el músculo esquelético como expresión del no acoplamiento de proteínas 2-3. Similar a los efectos periféricos de la leptina, es posible que la adiponectina aumente la sensibilidad a la insulina en músculo e incremente la oxidación de ácidos grasos39.
Con respecto a la adiponectina y su relación con la arteriosclerosis, los estudios muestran que se acumula en la pared de los vasos dañados e inhibe la inducción del TNFα de la adhesión de las células endoteliales arteriales. Los modelos de ratones transgénicos deficitarios de adiponectina muestran mayor formación de neointima ante una presión externa frente a los controles. En humanos se relaciona de forma inversa a la reactividad vascular52. Por otro lado, la adiponectina inhibe la proliferación de progenitores mielomonocíticos e inhibe la fagocitosis y producción de TNFα de los macrófagos, hallazgos compatibles con la actividad antiinflamatoria53.
Resistina La resistina es una hormona tejido específico del tejido adiposo de 10-kDa que fue recientemente identificada como reguladora de la adipogénesis pero que disminuye con el tratamiento de los agonistas PPARε. La inyección de resistina en el ratón reduce la tolerancia a la glucosa y la acción de la insulina. Cuando la resistina experimentalmente fue inyectada a niveles fisiológicos produjo un aumento de los niveles de insulina y disminución de glucosa. La resistencia a la insulina causada por infusión de resistina fue atribuida a un aumento en la producción de glucosa y no a un aumento de la captación. Esto indica que la resistina tiene un claro y rápido efecto a nivel hepático pero no a nivel de la sensibilidad periférica de la insulina40. Aunque algunos estudios han dudado sobre el papel de la resistina en la resistencia de la insulina asociada con la obesidad, es posible que los niveles séricos no se correlacionen con el RNAm o niveles de proteína, fenómeno observado por otras adipoquinas en condiciones especiales41.
Proteína estimulante de la Acilación (ASP) Como se comentó anteriormente, la ASP se encuentra comprometida en el sistema complemento por los factores C3, factor B, y adipsina. Estos tres precursores proteicos son producidos y secretados por el adipocito. Se sabe que aumenta la lipogénesis localmente e inhibe la sensibilidad de la LPA que media en la lipólisis. Una disminución en el ratón de C3 juega un papel importante en la producción calórica, la absorción de grasas, pero no son significativas. En ratones hay resistencia a la ganancia de peso inducida con dieta hipercalórica y a un aumento en los niveles de ácidos grasos libres posprandial. Los niveles de ASP se encuentran elevados en pacientes obesos y disminuidos después del ayuno o pérdida de peso42.
4.2. Moléculas e inflamación
Factor de Necrosis Tumoral alfa (TNFα) El TNFα es una citoquina producida por monocitos, linfocitos, tejido adiposo y músculo. Se manifiesta a través de dos receptores de membrana (TNFR): TNFR1 (p60) y TNFR2 (p80). Las fracciones solubles de estos receptores resultan de la proteolisis de la porción extracelular del receptor cuando el TNFα se une a él. El adipocito tiene unos niveles de RNAm y expresión proteica de TNFα bajos; sin embargo, el receptor se halla sobre-expresado en personas obesas con aumento del IMC y de la circunferencia abdominal43.
El TNFα ha sido implicado como un regulador de la sensibilidad a la insulina. Estudios in vivo han demostrado que el adipocito de roedores obesos con resistencia a la insulina (RI) y de humanos obesos producen significativamente mayor cantidad de TNFα y su neutralización produce un aumento en la captación de glucosa en respuesta a la insulina. A la inversa se ha demostrado que una mayor cantidad de TNFα en sujetos con un polimorfismo en la posición 308 de su promotor se asocia a un incremento de la masa grasa y de la RI. Los sujetos obesos al perder peso presentan una disminución del TNFα y no hay diferencias en los pacientes con o sin RI cuando se corrige el IMC44. Varios mecanismos han sido propuestos de la acción de la TNFα en inducir RI: defecto en la capacidad del receptor de la insulina para la fosforilación y disminución de la expresión génica de los transportadores de glucosa insulino-sensibles (GLUT-4). Se ha visto que en la obesidad se halla aumentado el TNFα asociado a la membrana por un defecto en el procesamiento a su forma soluble. El TNFα transmembrana es capaz de generar RI local y así alterar en forma autocrina la biología del adipocito45.
El TNFα parece jugar un papel en la fisiopatología de la hipertensión (HTA) asociada a la obesidad. Estimula la producción de endotelina 1 y angiotensinógeno in vitro. En el modelo de rata hipertensa se aumenta significativamente la síntesis y secreción de TNFα en respuesta al lipopolisacárido. Se ha encontrado una asociación entre los niveles de TNFα y la tensión arterial sistólica en personas con adiposidad grado 2-3. Parece que juega papel en las alteraciones lipídicas asociadas a la RI. El TNFα en situación de infección-inflamación incrementa la concentración de triglicéridos (TG) por estimulación de la producción de lipoproteína VLDL46.
Interleuquina -6 (IL-6) La IL-6 es producida por diferentes tipos celulares incluyendo las células del sistema inmune, células endoteliales, fibroblastos, miositos y adipocitos mediando en la respuesta inflamatoria y de estrés. Dado que la concentración de IL-6 es proporcional a la masa grasa, el tejido graso es una fuente importante de esta citoquina. Se ha calculado que la tercera parte proviene del adipocito, su producción y concentración se asocia al IMC en hombres obesos y mujeres posmenopáusicas47. Se ha asociado aumento de IL-6 con la aparición de dislipidemia (aumento TG, disminución HDL) en pacientes con síndrome metabólico, aumento de la proteína C reactiva (PCR). Tanto la IL-6 como la TNFα disminuyen en la expresión de la lipoproteína lipasa (LPL) y podrían tener un papel importante en la captación de ácidos grasos por el adipocito48.
De acuerdo a observaciones recientes las concentraciones de IL-6 se relacionan con la RI en el hombre e incluso con capacidad predictiva del DM2. Por otro lado se relaciona en forma significativa con la tensión arterial, de hecho la IL-6 estimula el sistema nervioso central y simpático y aumento del colágeno en la pared vascular, inducción en la síntesis de fibrinógeno, aumento en la concentración de angiotensinógeno precursor de la angiotensina 2 de poder vasoconstrictor49-51.
4.3. Efectos vasculares
La microvasculatura en el tejido adiposo es única. Como tejido que tiene un potencial de crecimiento dado por sus propiedades metabólicas y el alto grado de plasticidad con respecto a la vascularización. Se ha demostrado experimentalmente que un inhibidor de la angiogénesis resulta en una disminución del peso y pérdida del tejido graso en varios modelos de ratones obesos54. Por otra parte se ha identificado que el monobutirin, una molécula proangiogénica de origen lipídico, puede servir como factor neovascularizante durante la expansión del tejido adiposo55. Adicionalmente el Factor -1 de crecimiento vascular endotelial (VEGF) contribuye en este proceso56.
4.4. Efectos de las hormonas esteroideas
Los esteroides sexuales juegan un papel importante tanto en el adipocito maduro como en la fase de diferenciación. La exposición a estrógenos incrementa dos veces la proliferación de los adipocitos en ratas hembras. Este efecto está mediado por el receptor estrogénico dado que ante la presencia de un agonista ICI182780 su efecto es nulo. Se han reportado los estrógenos en tumores mamarios y los andrógenos en línea celular prostática modulan la proliferación por “up-regulation” en el receptor de EGF y el IGF1R. Sin efecto significativo en preadipocitos de rata. Mientras que el factor de crecimiento similar a la insulina (IGF1) es un potente factor mitogénico en estas células57. La regulación de la adipogénesis por los estrógenos por un incremento de la actividad de la G-6-fosfato dehidrogenasa (GPDH) al parecer depende del género porque este efecto se encuentra restringido a la región parametrial de ratas y en concentraciones farmacológicas en preadipocitos del epidídimo. Su expresión puede estar modulada por los diferentes subtipos de receptores (alfa y beta) y cofactores de los receptores nucleares como el coactivador de los receptores esteroideos (SRC) que se ha reportado como sexo específico (57ª). Estas modificaciones explican el comportamiento del tejido adiposo durante la pubertad, el embarazo y el climaterio femenino. Experimentalmente los diferentes andrógenos (Testosterona (T), Dihidro testosterona (DHT), dehidroepiandrosterona sulfato (DHEAS), androstanediol, y androstenediol en bajas concentraciones fallan en la proliferación de los adipocitos de ratas machos. Otros estudios muestran como la DHEA en concentración micromolar induce efectos antimitogénicos en células 3T3-L1 o en precursores estromales de tejido adiposo de ratones y cerdos58. Se postula que la acción de los andrógenos se realiza por dos mecanismos, uno a través de los receptores en el adipocito y otro para explicar el efecto antiadipogénico de los andrógenos que se encuentra relacionado con la reducción de la transcripción de genes que codifican factores transcripcionales en el adipocito. Una de las unidades de genes reguladores de los procesos de adipoconversión son los PPARε que podrían ejercer su efectos sobre los andrógenos por la siguientes razones:
1. Los genes regulatorios de los Parí incluyen varios elementos de respuesta hormonal (ERE) como el GRE donde el dominio del DNA se une al receptor de glucocorticoide pero también al receptor de andrógenos59. 2. Existen dos reportes donde el glucocorticoide dexametasona incrementa la expresión de los PPARε en los fibroblastos 3T3. 3. Una familia de los PPAR como el PPARα se expresa en células hepáticas60. Uno de los factores esenciales en la regulación de la conversión de tejido adiposo en la células 3T3-L1 es el IGF1, el cual se encuentra disminuido en células precursoras epididimales posiblemente a través del receptor de andrógenos y explica parcialmente por qué los andrógenos se encuentran disminuidos en las capas profundas del tejido adiposo61. Se ha evidenciado que los altos niveles de precursores androgénicos como la DHEA y DHEAS se encuentran en tejido graso abdominal. La DHEA inhibe la conversión en el adipocito de las líneas celulares 3T3-L1 y F442A en preadipocitos de roedores y cerdos. Se han postulado dos mecanismos de acción: uno debido a la disminución en la síntesis de ácidos grasos por inhibición de la GPDH y otro por una reducción en la expresión de C/EBPα62.
4.5. Adipoquinas y cáncer
Estudios epidemiológicos han identificado que la obesidad es uno de los factores de riesgo para cáncer. En un estudio en el E.U.A. sobre 900. 000 adultos mostró una asociación entre un aumento del IMC y riesgo de muerte por cáncer en un período de 16 años63. Se acepta que la lesión se encuentra confinada a las células estromales y donde el medio ambiente de los adipocitos en mujeres obesas posmenopáusicas pueden estar comprometidos como en el cáncer de glándula mamaria y médula ósea. Experimentalmente se ha demostrado que los factores secretados por los adipocitos promueven la tumorogénesis incrementando la proliferación celular, potencial invasión, y angiogénesis. Es el caso de la proteína SP1 que en roedores promueve el desarrollo de líneas celulares para cáncer mamario64. Existe otra proteína de la matriz extracelular del adipocito que es muy abundante y se postula como regulatoria de la tumorogénesis y progresión del cáncer65. Faltan muchos estudios para conocer el papel que tienen los diferentes cofactores del adipocito en la genésis del cáncer.
Referencias
- Viveros AV, Laviada HM, Bastarrachea RS. Influencia endocrina y paracrina sobre la adipogénesis. Rev Endocrinol Nutri 2002; 10: 151-164.
- Clement K et al. Genetic variation in B3 adrenergic receptor and increased capacity to gain weight in patients with morbid obesity. NEJM 1995; 1241: 333-352.
- Leroy P, Dessolin S, Villageois P et al. Expresion of ob gen in adipose cells. J Biol Chem 1996; 271: 2365-2368.
- Hwang CS, Mandrup S, MacDougald OM, Geiman DE, LaneMD. Transcriptional activation of the mouse obese gene by CCAAT/enhancer protein. Proc Natl Acad Sci USA 1996; 93: 873-877.
- Varzaneh FE, Shillabeer G, Wong K-L, Lau DCW. Extracellular matrix components secreted by microvascular endothelial cells stimulate preadipocyte differentiation in vitro. Metabolism 1994; 43: 906-912.
- Lau DCW, Roncari DAK, Hollenberg CH. Release of mitogenic factors by cultured preadipocytes from a massively obese human subjects. J Clin Invest 1987; 79: 632-636.
- Cornelius P, MacDougald OA, Lane MD. Regulation of adipocyte development. Annu Rev Nutr 1994; 14: 99-129.
- Smith PJ, Wise LS, Berkowitz R, Wan C, Rubin CS. Insulin-like growth factor is an essential regulator of the differentiation of 3T3-L1 adipocytes. J Biol Chem 1988; 263: 9402-9408.
- Knight DM, Chapman AB, Navre M, Drinkwater L, Bruno JJ, Ringold GM. Requirements for triggering of adipocyte differentiation by glucocorticoids and indomethacin. Mol Endocrinol 1987; 1: 36-43.
- Darimont C, Gaillard D, Ailhaud G, Negrel R. Terminal differentiation of mouse preadipocyte cells: adipogenic and antimitogenic role of triodothyronine. Mol Cell Endocrinol 1993; 98: 67-73.
- Aihaud G. Extracellular factors signaling pathways and differentiation of adipose precursor cells. Curr Opin Cell Biol 1990; 2: 1043-1019.
- Serrero G, Mills D. Physiological role of epidermal growth factor on adipose tissue development in vivo. Proc Natl Acad Sci USA 1991; 8: 3912-3916.
- Luetteke N, Lee D, Palmiter R, Brinster R, Sandgren E. Regulation of fat and muscle development by transforming growth factor alpha in transgenic mice and in cultured cells. Cell Growth Diff 1993; 4: 203-213.
- Bain G, Ray WJ, Yao M, Goalieb DT. Retinoic acid promotes neural and represses mesodermal gene expression in mouse embryonic stem cells in culture. Biochem Biophys Res Commun 1996; 223:
- 694.
- Cianflone K, Maslowska M. Differentiationinduced production of ASP in human adipocytes. Eur J Clin Invest 1995; 25: 817-825.
- Zorad S, Fickova M, Zelezna B, Macho L, Kral JG. The role of angiotensina II and its receptors in regulation of adipose tissue metabolism and cellularity. Gen Physiol Biophys 1995; 14: 383-391.
- Torlone E, Britta M, Rambotti AM, Perriello G, Santeusanio F et al. Improved insulin action and glycemic control after long-term angiotensin-converting enzyme inhibition in subjects with arterial hypertension and type II diabetes. Diabetes Care 1993; 16: 1347-1355.
- Darimont C, Vassaux G, Ailhaud G, Negrel R. Differentiation of preadipose cells: paracrine role of prostacyclin upon stimulation of adipose cells by angiotesin-II. Endocrinology 1994; 135: 2030-2036.
- Casimir DA, Miller CW, Ntambi JM. Preadipocyte differentiation blocked by prostaglandin stimulation of prostanoid FP2 receptor in murine 3T3-L1 cells. Differentiation 1996; 60: 203-210.
- Hertz R, Berman I, Keppler D, Bar TJ. Activation of gene transcription by prostacyclin analogues is mediated by the peroxisomeproliferators activated receptor (PPAR). Eur J Biochem 1996; 235: 42-47.
- Weiner FR, Smith PJ, Wertheimer S, Rubin CS. Regulation of gene expression by insulin and tumor necrosis factor alpha in 3T3-L1 cells. Modulation of the transcription of genes encoding acyl-CoA synthetase and stearoyl-CoA desaturase-1. J Biol Chem 1991; 266: 525-528.
- Ron D, Brasier AR, McGehee RJ, Habener JF. Tumor necrosis factor-induced reversal of adipocytic phenotype of 3T3-L1 cells is preceded by a loss of nuclear CCAAT/enhacer binding protein (C/EBP). J Clin Invest 1992; 89: 223-233.
- Yeh WC, Cao Z, Classon M, McKnight SL. Cascade regulation of terminal adipocyte differentiation by three members of the C/ EBP family of leucine zipper proteins. Genes Dev 1995; 9(2): 168-181.
- Batchvarova N, Wang XZ, Ron D. Inhibition of adipogenesis by the stress-induced protein CHOP(Gadd153). EMBO 1995; 14: 4654- 4661.
- Brun RP, Tontonoz P, Forman BM, Ellis R, Jasmine C et al. Differential activation of adipogensis by multiple PPAR isoforms. Genes Dev 1996; 10: 974-984.
- Schoonjans K, Staels B, Auwerx J. The peroxisome proliferator activated receptors (PPARS) and their effects on lipid metabolism and adipocyte differentiation. Biochim Biophys Acta 1996; 1302: 93-109.
- Forman BM, Tontonoz P, Chen J, Brun RP, Spregelman BM, Evans RM. 15-Deoxy-delta 12. 14 prostaglandin J2 is a ligand for the adipocyte determination factor PPAR gamma. Cell 1995; 83: 803-812.
- Hu E, Kim J, Sarraf P, Spiegelman B. Inhibition of adipogenesis through MAP Kinase-mediated phosphorylation of PPAR gamma. Science 1996; 274: 2100-2103.
- Kawabe Y, Sato R, Matsumoto A, Honda M, Wada Y, et al. Regulation of fatty acid synthase expression by cholesterol in human cultured cells. Biochem Biophys Res Common 1996; 219: 515-520.
- Kawada T, Kamei Y, Sugimoto E. The possibility of active form of vitamins A and D as suppressors on adipocyte development via ligand-dependent transcriptional regulators. Int J Obesity 1996; 20: 552-557.
- Friedman JM. The function of leptin in nutrition, weight, and physiology. Nutr Rev 2002; 60: S1–S14.
- Minokoshi Y, Kahn BB* *Role of AMP- activated protein kinase in leptin induced fatty acid oxidation in muscle. Biochem Soc Trans 2002; 31: 196-201.
- Ahima RS, Prabakaran D, Flier JS. Postnatal leptin surge and regulation of circadian rhythm of leptin by feeding. Implications for energy homeostasis and neuroendocrine function. J Clin Invest 1998: 101: 1020- 1027.
- Hotta K, Funahashi T, Bodkin NL, et al. Circulating concentrations of the adipocyte protein adiponectin are decreased in parallel with reduced insulin sensitivity during the progression to type 2 diabetes in rhesus monkeys. Diabetes 2001; 50: 1126-1133.
- Berg AH, Combs TP, Scherer PE. ACRP30/ adiponectin: an adipokine regulating glucose and lipid metabolism. Trends Endocrinol Metab 2002; 13: 84-89.
- Fasshauer M, Klein J, Neumann S, et al. Hormonal regulation of adiponectin gene expression in 3T3-L1 adipocytes. Biochem Biophys Res Commun 2002; 290: 1084-1089.
- Hotta K, Funahashi T, Arita Y, Takahashi M, et al. Plasma concentrations of a novel, adipose-specific protein, adiponectin, in type 2 diabetic patients. Arterioscler Thromb Vasc Biol 2000; 20: 15951599.
- Bluher M, Michael MD, Peroni OD, et al. Adipose tissue selective insulin receptor knockout protects against obesity and obesity-related glucose intolerance. Dev Cell 2002; 3: 25-38.
- Yamauchi T, Kamon J, Waki H, et al. Globular adiponectin protected ob/ob mice from diabetes and apoE deficient mice from atherosclerosis. J Biol Chem 2002; 278: 2461-2468.
- Steppan CM, Bailey ST, Bhat S, Brown EJ, et al. The hormone resistin links obesity to diabetes. Nature 2001; 409: 307-312.
- Pajvani UB, Du X, Combs TP, Berg AH, et al. Structure-function studies of the adipocyte secreted hormone Acrp30/adiponectin: implications for metabolic regulation and bioactivity. J Biol Chem 2002; 278: 9073-9085.
- Faraj M, Havel PJ, Phelis S, et al. Plasma acylation-stimulating protein adiponectin, leptin, and ghrelin before and after weight loss induced by gastric bypass surgery in morbidly obese subjects. J Clin Endocrinol Metab 2003; 88: 1594-1602.
- Fernández-Real JM, Broch M, Ricart W, et al. Plasma levels of the soluble fraction of Tumor Necrosis Factor Receptor -2 and insulin resistance. Diabetes 1998; 47: 1752- 1762.
- Bluher M, Kratsch J, Praschke R. Plasma levels of tumor necrosis factor-α, angiotensin- II, growth hormone, and IGF-1 are not elevated in insulin-resistant obese individuals with impaired glucose tolerance. Diabetes Care 2001; 24: 328-334.
- Xu H, Hirosumi J, Uysal T, Guler AD, Hotamisligil GS. Exclusive action of transmembrane TNF-α in adipose tissue leads to reduced adipose mass and local but not systemic insulin resistance. Endocrinology 2002; 143: 1502-1511.
- Grunfeld C, Feingold KR. Role of cytokines in inducing hyperlipidemia. Diabetes Care 1992; 41: 97-101.
- Fernández-Real JM, Vayreda M, Richart C, et al. Circulating IL-6 levels, blood pressure and insulin sensitivity in apparently healthy men and women. J Clin Endocrinol Metab 2001; 86: 1154-1159.
- Päth G, Bornstein SR, Ehrart-Bornstein M, Scherbaum WA. Interleukin-6 and the interleukin-6 receptor in the human adrenal gland: expresión and effects on steroidogenesis. J Clin Endocrinol Metab 1997; 82: 2343-2349.
- Kern Pa, Ranganathan S, Li C, Wood L, Ranganathan G. Adipose tissue tumor necrosis factor and IL-6 expression in human obesity and insulin resistance. Am J Physiol Endocrinol Metab 2001; 280: E745-E751.
- Pradhan AD, Manson JE, Rifai N, et al. Creactive protein, interleukin 6, and risk of developing type 2 diabetes mellitus. JAMA 2001; 286: 327-334.
- Humphries SE, Luong LA, Ogg MS, et al. The interleukin-6-174 G/C promoter polymorphism is associated with risk of coronary heart disease and systolic blood pressure in helthy men. Eur Heart J 2001; 22: 2243-2252.
- Ouchi N, Kihara S, Arita Y, et al. Novel modulator of endothelial adhesion molecules: adipocyte-derived plasma protein adiponectin. Circulation 1999; 100: 2473-2476.
- Ouchi N, Kihara S, Arita Y, et al. Adiponectin, an adipocyte-derived plasma protein, inhibits NF-kb signalling through a cAMP-dependent pathway. Circulation 2000; 102: 1296- 1301.
- Kratchmarova I, Kalume DE, Blagoev B, et al. A proteomic approach for identification of secreted proteins during the differentiation of 3T3–L1 preadipocytes to adipocytes. Mol Cell Proteomics 2002; 1:
- 222.
- Lin Y, Lee H, Berg AH, Lisanti MP, Shapiro L, Scherer PE. LPS activated TLR-4 receptor induces synthesis of the closely related receptor TLR-2 in adipocytes. J Biol Chem 2000; 275: 24255-24263.
- Mick GJ, Wang X, McCormick K. White adipocyte vascular endothelial growth factor: regulation by insulin. Endocrinology 2002; 143: 948-953.
- Benito M, Valverde AM, Lorenzo M. IGF1: a mitogen involved in differentiation processes in mammalian cells. Int J Biochem Cell Biol 1996; 28: 499-510.
- McIntosh M, Hausman R, Martin R, et al. Dehydroepiandrosterone attenuates preadipocyte growth in primary cultures of stromalvascular cells. Endocrinol Metab 1998; 38: E285-E293.
- Steineger HH, Sorensen HN, Tugwood J, et al. Dexamethasone and insulin demonstrate marked and opposite regulation of the steadystate mRNA level of the PPAR in hepatic cells. Eur J Biochem 1994; 225: 967-974.
- Wu Z, Bucher NLR, Farmer SR. Induction of PPAR during the conversion of 3T3 fibroblasts into adipocytes is mediated by CEBPß, CEBP and glucocorticoids. Mol Cell Biol 1996; 16: 4128-4136.
- Smith PJ, Wise LS, Berkowitz R, et al. IGF1 is an essential regulator of the differentiation of 3T3L1 adipocytes. J Biol Chem 1998; 263: 9402-9408[<http: //endo. endojournals. org/ cgi/ijlink?linkType=ABST&journal Code= jbc&resid=263/19/9402>
- Notelovitz M, Gudat JL, Ware MD, et al. Lipids and lipoproteins in women after oophorectomy and the response to estrogen therapy. Br J Obstet Gynaecol. 1983; 90:
- 177.
- Commingus SR. Benefics and risk of longterm postmenopausal hormone therapy. In cardiovascular disease and HRT. Edit Samside G. Parthenon Publi Group 9. 1991.
- Howard BV. Lipoprotein metabolims in diabetes mellitus. J Lipid Res 1987; 28: 613-
- Weisweiler P. Plasma lipoprotein and lipase and lecithin: cholesterol acyltransferase activities in obese subjects before and after weigth reduction. J Clin Endocrinol Metab 1987; 65: 969-975.
Afiliaciones y notas
* MD. PhD. Profesor Uiversidad de la Sabana. Director del Laboratorio de Biología Molecular. Universidad de la Sabana. Bogotá. ** MD. MSc. Profesor Asociado Departamento de Obstetricia y Ginecología, Universidad Nacional de Colombia. Docente de Ginecología y Obstetricia. Universidad de Ciencia aplicada y ambiental (UDCA).
Cómo citar este artículo
Lizcano F, William Onatra H. Factores endocrinos y paracrinos que regulan el adipocito y su relación con el riesgo cardiovascular, dislipidemia y obesidad (Parte I). Rev Col Menop. 2007;13(3):227-239.
Lizcano, F., & William Onatra, H. (2007). Factores endocrinos y paracrinos que regulan el adipocito y su relación con el riesgo cardiovascular, dislipidemia y obesidad (Parte I). Revista Colombiana de Menopausia, 13(3), 227–239.
El archivo RIS se importa en Zotero, Mendeley o EndNote. Revisa los nombres de los autores: la cita se arma automáticamente a partir del artículo.